العالم بعيني فرخ. الجزء الأول: اللون والإدراك
1. عن الرؤية اللونية لدى الإنسان والدجاجة #
في مقالتي السابقة عن نمذجة رؤية القطط وعدتُ بأن أُري ما حولنا بعيني دجاجة. وحين بدأت العمل أدركتُ أن الشرح ينبغي أن يُقسَّم إلى جزأين: الأول عن الرؤية الرباعية الألوان والرؤية اللونية، والثاني عن زوايا الرؤية والرؤية بالعينين معًا، وعن حدة الإبصار والتركيز، وعن إعادة بناء الدماغ لصورة العالم المحيط، وأخيرًا عن النموذج نفسه، أي النموذج الذي يتيح للإنسان أن يحاول فهم شعور رؤية كل شيء من فوق المنقار.
وفي أثناء ذلك سنحاول الإجابة عن سؤال فلسفي قديم: «هل يمكن أن يكون ما أختبره أنا على أنه أحمر يختبره شخص آخر على أنه أخضر، بحيث لا يستطيع هو ولا أنا ولا أي مراقب خارجي أن يكتشف ذلك أبدًا؟» لنبدأ بكيفية رؤية الإنسان للعالم، أو بالأحرى بموضوع هذه المقالة: الخصائص المثيرة للاهتمام في الرؤية اللونية.
تاريخيًا، تتمتع معظم رباعيات الأطراف التي خرجت إلى اليابسة (ومنها البرمائيات والزواحف والطيور والثدييات) برؤية رباعية الألوان، أي أنها تستطيع أن تميّز ليس فقط الأزرق والأحمر والأخضر، بل الأشعة فوق البنفسجية أيضًا بوصفها لونًا مستقلًا1–4.
لكن السلف التاريخي للإنسان فقد القدرة على تمييز نصف الألوان من هذه المجموعة: فمعظم الثدييات لا تملك سوى نوعين من مستقبلات اللون البصرية2,7، بعد أن فقدت القدرة على رؤية اللون الأزرق المخضر وعلى التمييز بين الأحمر والأخضر. والتفسير الرئيس لهذا الفقدان هو أن هذا السلف كان يعيش حياة ليلية ولم تكن هذه الألوان لازمة له إطلاقًا5,6.
وفي وقت لاحق، احتاج ذلك الفرع من الثدييات الذي صار رئيسيات، وعاش حياة نهارية، لسبب ما إلى تمييز درجات الأحمر والأخضر (وهناك عدة فرضيات مختلفة في هذا الشأن). فنتيجة لطفرة انقسم مستقبل اللون الأحمر إلى اثنين8,9، وصارت منطقة حساسية المستقبل الجديد في نطاق أقصر موجة وأصبح ما نسميه المخروط الأخضر (لا تخلطوه بمستقبل اللون الأزرق المخضر لدى حيوانات أخرى مثل البرمائيات والزواحف! سنعود إلى هذا لاحقًا). ومع أن الفارق بين منطقتي حساسية المستقبلين الأحمر والأخضر ليس كبيرًا، اكتسبت الرئيسيات القدرة على التمييز بين درجات الأحمر والأخضر. وفوق ذلك ظهرت لها ألوان جديدة: الأصفر والبرتقالي.
وبالمناسبة، تجدر الإشارة إلى العصيّات، وهي نوع آخر من المستقبلات في الشبكية. إنها شديدة الحساسية وتعمل في الأساس عند الغسق وفي الضوء الخافت، حين لا تحصل المخاريط على ما يكفي من الفوتونات؛ أما في النهار وتحت الضوء الساطع فإن العصيّات «تَعمى» (تتشبّع) ولا تشارك عمليًا في الرؤية اللونية. ومع ذلك، عند شدات الضوء المنخفضة، في نطاق الشفق الذي تعمل فيه المخاريط والعصيّات معًا، يمكنها أن تُسهم في تحسين الرؤية اللونية، فتضيف إشارة رابعة10. والعصيّات أشد حساسية للدرجات الزرقاء المخضرة (بحد أقصى عند نحو 500 نانومتر).
إذن، لدى الإنسان عادةً 3 أنواع من مستقبلات اللون، تُسمى S وM وL، أو المخاريط الزرقاء والخضراء والحمراء. وهناك أيضًا أشخاص لديهم انحرافات في الرؤية اللونية. فبعضهم يغيب لديه نوع واحد من المخاريط تمامًا، مما يسبب الرؤية الثنائية الألوان: عمى الأحمر (البروتانوبيا) عند غياب L، وعمى الأخضر (الديوترانوبيا) عند غياب M، وعمى الأزرق (التريتانوبيا) عند غياب S. والأكثر شيوعًا أن يكون المخروط موجودًا لكن حساسيته منزاحة. ففي ضعف تمييز الأخضر (الديوترانومالي)، وهو الشكل الأكثر شيوعًا، ينزاح المخروط الأخضر M نحو الأحمر، أي نحو L؛ وفي ضعف تمييز الأحمر (البروتانومالي) ينزاح المخروط الأحمر L على العكس نحو الأخضر. وفي الحالتين تتقارب منحنيات M وL، فيسوء التمييز بين الأحمر والأخضر بدلًا من أن يتحسن.
قد يكون لدى بعض الأشخاص نوع رابع من المخاريط، وهو عادةً شكل منزاح من L أو M، مما يمنحهم رؤية رباعية الألوان حقيقية (التتراكروماسيا)، أي القدرة على تمييز درجات في الجزء الأخضر–الأصفر–الأحمر من الطيف تبدو متطابقة لصاحب الرؤية الثلاثية الألوان العادية.
لا يرى الإنسان الأشعة فوق البنفسجية، على الأقل ما لم تُزَل عدسة العين التي تُعدّ مرشِّحًا طبيعيًا للأشعة فوق البنفسجية. أما من أُزيلت عدستهم (انعدام العدسة، الأفاكيا) أو استُبدلت في جراحة الساد بعدسة اصطناعية من دون مرشِّح للأشعة فوق البنفسجية فيبدؤون برؤية منطقة الأشعة فوق البنفسجية حتى 370 نانومتر11؛ غير أن هذا ليس مفيدًا جدًا للشبكية، وفي هذه الحالة يوصي الأطباء بشدة بارتداء النظارات الشمسية. لكن هناك أيضًا أمثلة على ثدييات ليس لديها مرشِّح كهذا وتستطيع بمستقبلها الأزرق أن ترى جزءًا من النطاق فوق البنفسجي بشكل جيد، مثل الفئران12,13.
وبالمناسبة، يعتمد نفاذ العدسة اعتمادًا كبيرًا على العمر. فعند الأطفال (حتى نحو 10 سنوات) تكون العدسة ما تزال شفافة جدًا: ففي «النافذة» عند نحو 315–320 نانومتر ينفذ منها حتى ثلاثة أرباع الضوء، ويصل جزء كبير من نطاق 320–400 نانومتر إلى الشبكية أيضًا، وهم قادرون على رؤية الأشعة فوق البنفسجية القريبة كضوء بنفسجي شاحب. لكن العدسة مع الزمن تُراكِم أصباغًا وتُغلق هذه النافذة: فعند الشباب (20–29 عامًا) ينفذ من الأشعة UV-A بضعة بالمئة فقط، وينزاح الحد الأدنى للطيف المرئي إلى 380–390 نانومتر؛ وفي منتصف العمر تُحجب الأشعة فوق البنفسجية القريبة تقريبًا بالكامل، وبحلول 60–70 سنة يتسلل الحد إلى المنطقة المرئية، إلى 400–420 نانومتر وما بعدها14,15.
ولا تتضرر الأشعة فوق البنفسجية وحدها: فمع التقدم في العمر تصفرّ العدسة وتنفذ منها النهاية القصيرة للطيف كلها بصورة أسوأ، أي الدرجات البنفسجية والزرقاء. فمثلًا، بالانتقال من مجموعة 40–59 سنة إلى مجموعة 60 فما فوق ينخفض النفاذ عند 420 نانومتر بنحو 40%، وعند 580 نانومتر (الأصفر) بنسبة 18% فقط16. ولهذا قد يبدو البنفسجي الداكن لكبار السن أقرب إلى الرمادي الداكن. وإذا أخذنا في الحسبان أيضًا انقباض حدقة العين مع العمر، فإن الشبكية بحلول سن 70–80 تبدأ في تلقي ضوء أقل بعدة أضعاف عند طول موجة الأزرق (نحو 460 نانومتر) مما كانت تتلقاه في سن العشرين17.
وبالعودة إلى الرؤية اللونية لدى الإنسان، هكذا تبدو:
في الزاوية العلوية اليسرى منحنيات حساسية مستقبلات S وM وL لدى الإنسان18–21 للموجة الطيفية النقية. وفي الزاوية العلوية اليمنى رسم متحرك للمدى اللوني الكامل: جميع الألوان التي يمكن للإنسان أن يراها (حسنًا، على الأقل بقدر ما تستطيع الشاشة إعادة إنتاجه). وفي الأسفل 5 أشرطة توضح المدى اللوني للإنسان عند درجات تشبّع مختلفة.
سأتوقف عند آخر مخططين على حدة، لأن المصطلحات المعروضة فيهما ستُستخدم لاحقًا. لترميز الألوان كثيرًا ما يكون نموذج HSV مناسبًا — Hue (الصبغة) وSaturation (التشبّع) وValue (القيمة).
تُرمَّز الصبغة على عجلة الألوان، حيث لكل من الأحمر والأخضر والأزرق إحداثيٌّ قطبي خاص به، وهو زاوية الدوران التي تشير إلى لون أو مزيج من الألوان. ويمكنكم رؤية عجلة الألوان هذه في الرسم المتحرك في الزاوية العلوية اليمنى.
تُرمَّز القيمة (السطوع) على أنها كمية خطية من 0 إلى 100%، حيث 0 هو الأسود و100 هو الأفتح.
يُرمَّز التشبّع، مثل السطوع، من 0 إلى 100%، حيث يعني التشبّع 0 غياب أي صبغة واضحة (تدرجات الرمادي)، و100% هو اللون الأكثر وضوحًا.
وفي ما يلي من هذا النص سأذكر التشبّع كثيرًا، وأحيانًا السطوع أيضًا.
2. فضاء الألوان الطيفي لدى الدجاجة #
لننظر إلى مخطط حساسية مستقبلات الرؤية لدى الدجاجة. فإلى جانب S وM وL، كما لدى الإنسان، لدى الدجاجة نوع رابع من المستقبلات الحساسة للأشعة فوق البنفسجية، يُسمى مخاريط V22–25,28. وكما في مخطط حساسية مخاريط الإنسان، جرى تطبيع جميع المنحنيات إلى حساسية أشد المستقبلات حساسية؛ وعند الدجاجة، خلافًا للإنسان، هذا المستقبل هو V.
توضيح موجز. مع أننا نسمّي مستقبلات الدجاجة أيضًا V وS وM وL، فإن هذه مجرد تسميات اصطلاحية بحسب مدى الطول الموجي، وليست إشارة إلى قرابة بينها وبين مستقبلات الإنسان التي تحمل الأسماء نفسها. فوراثيًا، يقابل مخروط V عند الدجاجة مستقبل S الأزرق لدينا، لكنه منزاح إلى منطقة ذات موجات أقصر12. أما مستقبل S الأزرق ومستقبل M الأخضر عند الدجاجة فهما بالضبط المستقبلان الأزرق المخضر والأخضر اللذان فقدتهما الثدييات2,7. وحده مستقبل L الأحمر عند الدجاجة قريب من مستقبلنا الأحمر، الذي انفصل عنه لاحقًا مستقبل M الأخضر عند الإنسان. وقد جرى شرح هذا أعلاه.
وهكذا فإن مجموعة المستقبلات عند الدجاجة تختلف تمامًا عن مثيلتها عند الإنسان، وصورة المدى اللوني تصبح مختلفة كليًا. وسنتناول كل هذا بالتفصيل في ما يلي.

لنحدد فورًا كيف سنعرض المكوّن فوق البنفسجي من اللون. فاللون الأرجواني (الماجنتا) «محجوز» أصلًا في رؤية الإنسان بوصفه مزيجًا من الأحمر والأزرق، لكننا ما زلنا نحتاج إلى طريقة لعرض الأشعة فوق البنفسجية. من الآن فصاعدًا سنستخدم الضجيج اللوني لعرض الأشعة فوق البنفسجية. وعند امتزاجه بألوان أخرى يرفع أو يخفض قليلًا سطوع اللون الذي يمتزج به وتشبّعه معًا. وتشير كثافة الضجيج إلى شدة التأثير في مخروط V.
يعرض المخطط أدناه الألوان الأساسية — الأحمر والأصفر والأخضر والسماوي والأزرق والأرجواني — ممزوجة بالأشعة فوق البنفسجية. ولكل لون يمثل المحور الرأسي السطوع من 0 في الأسفل إلى 100% في الأعلى، ويمثل المحور الأفقي زيادة الأشعة فوق البنفسجية من 0 إلى 100%.
والآن لنقارن منحنيات إدراك الإنسان والدجاجة في مخطط واحد:
في مخطط الإدراك تقع منحنيات الإنسان في الأعلى ومنحنيات الدجاجة في الأسفل، وبينهما ألوان الطيف مرسومة على شكل شريط.
كما يتضح من المنحنيات، فإن حساسية الدجاجة للأشعة فوق البنفسجية أعلى بكثير مقارنة بحساسية المخاريط الأخرى، ولذلك ففي ظروف تتفاوت فيها مستويات الإضاءة فوق البنفسجية في الخلفية ستَرى الدجاجة بقية ألوان الطيف على نحو مختلف.
لنحاول نمذجة ذلك:
لكن من المهم أن نشير إلى تفصيل جوهري آخر: فكل من الإنسان والدجاجة يميّز الألوان الطيفية النقية المتجاورة عن طريق قياس مستوى استثارة مخاريط مستقبل واحد أو عدة مستقبلات. فإذا وقعت الإشارة في منطقة مخروط واحد فقط، كما في حالة الأحمر ذي الموجة الطويلة أو الأزرق ذي الموجة القصيرة عند الإنسان، فلا يمكن تمييز الألوان المتجاورة، وإنما يتغير سطوعها فقط.
ولا تتاح إمكانية إدراك الألوان الوسيطة إلا حين يمكن قياس الفرق بين استثارة مستقبلات من نوعين مختلفين أو أكثر.
فمثلًا، عند معظم الثدييات، ومع فقدان المستقبلات الزرقاء المخضرة والخضراء، يقع الضوء إما في منطقة حساسية S فقط، أو في منطقة L، أو في منطقة تداخلهما. ونتيجة لذلك لا يرى الكلب سوى الأزرق والأصفر والتدرج من الأزرق إلى الأصفر في منطقة تداخل S وL. وعند الإنسان، مع إضافة مخاريط M، تصبح هناك إمكانية لرؤية الفرق بين الأخضر والأحمر أيضًا، لكن دقة تمييز الدرجات المتجاورة في المنطقة الخضراء–الحمراء تعتمد مباشرةً على الفرق بين مستويي استثارة M وL عند ذلك الطول الموجي.
وهذا يعني أنه عندما يقع لون طيفي على زوج من أنواع المخاريط المختلفة في منطقة يكون فيها الفرق في استجابة المستقبلات صغيرًا، فإن الدرجات المجاورة له ستتميّز عنه بصورة أسوأ مما لو وقعت في منطقة يكون فيها الفرق بين الإشارات أكبر.
إن توزيع قمم حساسية مخاريط S وM وL عند الدجاجة يختلف عن توزيعها عند الإنسان، وكذلك عرض التقاط الإشارة، مما يعني أن قوة إدراك الفرق بين الدرجات الطيفية النقية لا بد أن تختلف أيضًا.
ويلقي هذا، بالمناسبة، بعض الضوء على السؤال القديم عن الطيف المقلوب، الذي يعود إلى لوك وصاغه بصيغته الحديثة سيدني شوميكر ونيد بلوك: «هل يمكن أن تكون تجربتي للأحمر مطابقة ظاهراتيًا لتجربتك للأخضر، مع أن جميع حالاتنا السلوكية والوظيفية متطابقة؟» فإدراك الألوان الطيفية النقية مرتبط بالطول الموجي الفيزيائي وبمستوى استثارة العصبونات القادمة من المستقبلات.
وإذا اتخذنا صورة إدراك الطيف الكامل لدى الإنسان أمرًا مسلَّمًا (فبعد كل شيء تُعاير جميع الشاشات لتطابق هذا الطيف قدر الإمكان)، فإننا نستطيع إعادة معايرة هذا الشريط الطيفي بحسب الفرق بين مستويي إدراك الإنسان والدجاجة، لنحصل على المخطط التالي:
يمكن أن نرى في المخطط شريطًا داكنًا واضحًا في منطقة البنفسجي. فالأمر أن البنفسجي الطيفي يبدو للإنسان أزرقَ مائلًا إلى الحمرة، لأن الأطوال الموجية القصيرة تستثير مخاريط L استثارة ضعيفة إلى جانب مخاريط S؛ والتركيبة نفسها S + L الناتجة عن مزج الضوء الأحمر والأزرق تعطي الأرجواني غير الطيفي. أما عند الدجاجة فلا ينطبق هذا، لأن لديها مستقبلًا من النوع V، لكن المزيد عن ذلك لاحقًا.
يعرض الصف السفلي من المخطط منحنيين بُنيت عليهما التشوهات (المحور الأفقي يمثل الصبغات R وY وG وC وB وM): المنحنى البرتقالي هو درجة تشوّش الصبغة (كلما ارتفع المنحنى زاد عجز الدجاجة عن تمييز الدرجات المجاورة لهذا اللون)، والمنحنى الأزرق الفاتح هو تشبّع اللون بالنسبة إلى الإنسان (وكلما انخفض زاد تخلّف الدجاجة عن الإنسان في التمييز). ويتبين منهما أن التمييز عند الدجاجة غير متساوٍ. فهي تميّز الدرجات المتجاورة أفضل بوضوح من الإنسان في مناطق الأزرق (نحو 450 نانومتر) والأخضر (510–520 نانومتر) والأصفر المائل إلى البرتقالي (570–580 نانومتر): فمثلًا ستميّز الدجاجة بين لونين أصفرين متجاورين بدقة تبلغ نحو ضعف دقة الإنسان. أما في منطقة الأزرق الفاتح والسماوي (470–500 نانومتر) والبرتقالي والأحمر (600–640 نانومتر) فهي تميّز الدرجات أسوأ بكثير من الإنسان. وعند الطرف البنفسجي–الأزرق من الطيف (دون 430 نانومتر) يكون التمييز ضعيفًا لدى كليهما.
لنرسم مخططًا يوضح دقة التمييز في الرؤية اللونية لدى الإنسان والدجاجة على الدرجات الطيفية النقية:
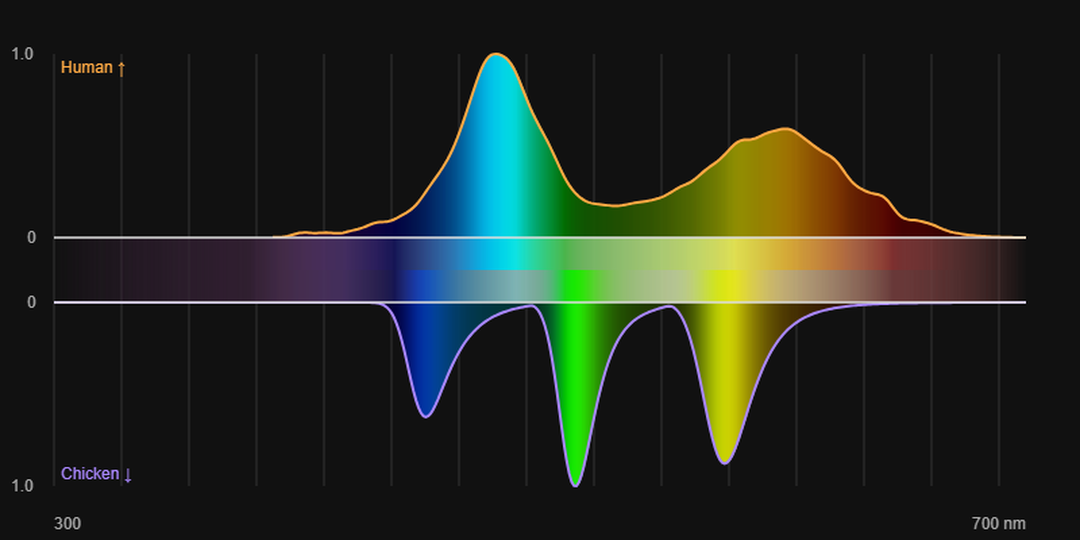
في الوسط تُظهر الأشرطة مقارنة لشدة تمييز الألوان المتجاورة: كلما ضعفت قدرة الإنسان على تمييز الدرجات، ظهر الطيف في تلك المواضع أبهت (الشريط العلوي في الوسط)، وكذلك الحال بالنسبة إلى الدجاجة (الشريط السفلي في الوسط).
نموذج «حدّ ضجيج المستقبلات» (Receptor Noise Limited، RNL)، الذي اقترحه ميشا فوروبيوف ودانيال أوسوريو35، أداة قياسية للتنبؤ بعتبات اللون لدى الحيوانات، ولا سيما ذات الرؤية الرباعية الألوان — الطيور والزواحف وغيرها26,27.
الافتراض الأساسي للنموذج هو أن عتبة التمييز بين لونين يحددها حصرًا الضجيج في المستقبلات الضوئية (ضجيج الطلقات + الضجيج العصبي)، لا المراحل العصبية اللاحقة. وتُحسب المسافة اللونية في فضاء مُطبَّع على ضجيج كل نوع من أنواع المخاريط.
ولا يتطلب النموذج معرفة القنوات المتضادة بعينها، ولذلك فهو مناسب خصوصًا للأنواع التي لم تُدرَس فيها الفيزيولوجيا العصبية للتضاد دراسةً كافية.
3. لنحاول رسم عجلات الألوان للإنسان والدجاجة #
تُولَّد عجلة الألوان للإنسان ببساطة: هناك ثلاثة ألوان أساسية، وكل اثنين منها يؤلفان معًا الألوان التي يراها الإنسان.
لكن لدى الإنسان لونًا افتراضيًا واحدًا: مزيج الأحمر والأزرق الذي يعطي الأرجواني (الماجنتا). وليس لهذا اللون طول موجي في الطيف، فينشأ الإحساس بهذا اللون في الدماغ مباشرةً عن طريق جمع إشارات الاستثارة من المخاريط الزرقاء والحمراء. وإذا وُجدت معها إشارة من المخروط الأخضر، يحصل الإنسان على الإحساس باللون الأبيض.
أما لدى الدجاجة فهناك مخروط إضافي. فماذا يعني هذا؟
- أولًا، ينبغي أن تظهر ألوان افتراضية جديدة:
- أخضر UV (لا تكاد حساسية مخاريط M تتداخل مع حساسية مخاريط V)؛
- أحمر UV (بالمثل: لا تتداخل حساسية مخاريط L مع حساسية مخاريط V).
- ثانيًا، ينبغي أن تظهر ألوان انتقالية جديدة، مثل الأصفر عندنا بين الأحمر والأخضر، والسماوي (الأزرق الفاتح) بين الأخضر والأزرق.
- وأخيرًا، ينبغي أن ينشأ لديها الإحساس باللون الأبيض فقط عندما تتوازن إشارات المخاريط الأربعة كلها. أما إذا لم تكن الأشعة فوق البنفسجية موجودة في الإشارة المستقبَلة (مثلًا عند إضاءة اصطناعية بدرجة حرارة لونية «بيضاء»)، فينبغي أن تدرك الدجاجة مزيج الألوان الطيفية الزرقاء والحمراء والخضراء وحدها على أنه لون جديد مستقل.
لنحاول نمذجة عجلة الألوان «مباشرةً»، بوضع الألوان تباعًا على محيط الدائرة: الأحمر، الأخضر، الأزرق، الأشعة فوق البنفسجية، الأخضر + UV، الأحمر + UV، ثم الأزرق مرة أخرى، لنحصل على دائرة واحدة على جميع التركيبات الممكنة مثنى مثنى. ولمزيد من التعبيرية سنغيّر قوة إظهار الضوء للدرجات الانتقالية: فحيث يكون تمييز الدرجات أعلى منه عند الإنسان يُعزَّز التشبّع، وحيث يكون أدنى يُخفَّض على العكس. أما الأشعة فوق البنفسجية فسنرمز إليها، كما سبق، بالضجيج اللوني.
ولأن الإنسان لا يرى الأشعة فوق البنفسجية في الغالب، لا يبقى في الجزء الأيمن سوى المكوّن اللوني الناتج عن مزج اللونين.
4. ماذا يحدث عند الدجاجة حين يُمزج لونان طيفيان نقيان (مثلًا في الضوء المنعكس) #
لكن لهذا النهج الساذج في رسم عجلة الألوان مشكلة واحدة: ففي أغلب الأحيان نحن، والدجاجة أيضًا، لا ندرك خطوطًا طيفية نقية، بل خلائط من عدة ترددات ضوئية في آنٍ واحد. وفوق ذلك يمكن للتردد الواحد أن يثير عدة أنواع من المخاريط معًا، كما اتضح في الأطياف أعلاه. لذلك فإن تركيب الأشعة الضوئية ليس مجرد جمع على كل قناة من القنوات V وS وM وL، بل شيء أكثر تعقيدًا.
ينبغي هنا أن نقول شيئًا عن كيفية دمج الدماغ لإشارات المستشعرات. فكل مستقبِل لا يُبلغ إلا عن أمر واحد: مدى شدة استثارته. والمخروط لا يعرف ما الطول الموجي للضوء، ولذلك فإن إشارة مستقبِل واحد بمفردها لا تحمل معلومات دقيقة عن اللون الطيفي المرئي.
ينشأ الإحساس باللون في الدماغ عندما تُقارَن الإشارات القادمة من المخاريط المختلفة بعضها ببعض. فإشارات صف المستقبلات يُعاد تجميعها في ثلاث قنوات متضادة30–32: الأحمر–الأخضر (L مقابل M)، والأصفر–الأزرق (S مقابل مجموع L وM)، وقناة السطوع (L + M)، ثم تُمزج هذه القنوات من جديد فتُكوِّن الإحساس بالدرجات اللونية المألوفة لنا. وبتبسيط شديد:
A = 0.5·L + 0.5·M, RG = L − M, YB = S − 0.5·(L + M)
تحدد علامتا RG وYB والنسبة بينهما الدرجةَ اللونية33,34، ويحدد A السطوع، وعندما يكون RG = YB = 0 نحصل على الأبيض أو الرمادي. لنفترض أن L = 100 وM = 50 وS = 10. عندئذ A = 75، وRG = +50 (جهة الأحمر)، وYB = 10 − 75 = −65 (جهة الأصفر). والأحمر مع الأصفر يعطيان برتقاليًا مشبعًا.
في المخططات استُخدم نموذج للإدراك اللحظي: الاستجابة لمنبّه عند سطوع ثابت ومع تكيّف مع الأبيض المحايد. أما في الحياة الواقعية فتتراكم الإشارة اللونية مع الوقت، بل قد تُصاب العصبونات بحِمل زائد من اللون، فتتكيف معه وتُزيح المعيار نحو اللون السائد (تأثير النظارات الملوّنة: إذا نظرت طويلًا عبر نظارات وردية، فإن الإحساس بالإدراك اللوني الكامل يعود بعد مدة، وإن كانت القدرة على تمييز الدرجات اللونية المتجاورة ستسوء بالطبع).
ومن هنا تنبع أوهام بصرية مثل التباين المتعاقب والصورة اللاحقة السالبة (الصورة اللاحقة المتممة): انظر إلى شيء أحمر مدةً من الوقت، ثم إلى ورقة بيضاء، وسترى بقعة خضراء مائلة إلى الزرقة.
وكيف يعمل هذا عند الإنسان يمكن تقديره الآن على الشاشة: فالصورة عليها تتكوّن من جمع ضوء البكسلات الفرعية R وG وB (وأحيانًا W).
أما الدجاجة، فلكي تحصل على الإحساس نفسه باللون، عليها أن تأخذ من اللون الطيفي ذي الاستجابة الأضعف مقدارًا أكبر، أو مقدارًا أقل إذا كانت الاستجابة أقوى. لذلك يجب إعادة حساب حصيلة الجمع وفقًا لمنحنيات الحساسية اللونية.
لرسم المخطط سنأخذ مثنى مثنى لونين طيفيين نقيين (أي ضوءًا ذا طول موجي واحد بدقة)، ونمزجهما بنسب مختلفة ونحسب المنبّه من استجابات مخاريط V/S/M/L. سنحصل أولًا على النتيجة للإنسان، ثم نختار ما يقابلها للدجاجة.
أما UV فسنرمز إليه، كما سبق، بالضجيج اللوني (تُحدَّد الكثافة باستجابة مخاريط UV). فإذا أدركت الدجاجة اللون في منطقة ما بقوة أكبر من الإنسان، جعلنا اللون أكثر تشبّعًا، وإلا فأبهت.
المحاور: المحوران الأفقي والرأسي هما الطولان الموجيان λ1 وλ2 للّونين النقيين (300–650 نانومتر، بما في ذلك الأشعة فوق البنفسجية)، وفي كل خانة نتيجة مزجهما بنسبة 50 : 50 على قنوات RGB.
وبالنسبة إلى الإنسان فهذا مجرد متوسط بسيط للّونين. والإنسان لا يرى الأشعة فوق البنفسجية: فعلى يسار نحو 400 نانومتر تتناقص القناة الزرقاء ببساطة (حتى تصل إلى الصفر عند نحو 370 نانومتر)، أما القنوات الأخرى فلا تتغير.
وعلى اليمين يظهر انزياح توازن اللون عند المزج: ففي الدرجات الحمراء يغلب في المزيج اللون الواقع على المحور الرأسي (λ2)، وفي الدرجات الزرقاء اللون الواقع على المحور الأفقي (λ1)؛ والسطوع هو مقدار الانزياح.
5. عجلات ألوان مزج لونين طيفيين #
يمكن تمثيل الصورة نفسها بطريقة أخرى، على شكل عجلات ألوان، وفي الوقت نفسه إضافة نسب مختلفة من اللون الطيفي النقي المُمزوج. في كل عجلة تحدد الزاوية الطول الموجي للّون الأول λ1 (400–650 نانومتر، باتجاه عقارب الساعة من الحافة اليسرى)، ويحدد نصف القطر الطول الموجي للّون الثاني λ2 (400 نانومتر في المركز و650 نانومتر عند الحافة). يؤخذ اللون الأول بوزن 100%، واللون الثاني بوزن p = 25 و50 و75 و100% من الأول. في الأعلى يظهر الإنسان (متوسط RGB الموزون)، وفي الأسفل الدجاجة: تشبّع الألوان مُغيَّر وفقًا لأوزان الإدراك، ويُعرض UV بالضجيج (والكثافة بحسب حساسية مخروط UV للمزيج).
6. فضاء ألوان الإنسان لخلائط لونين طيفيين #
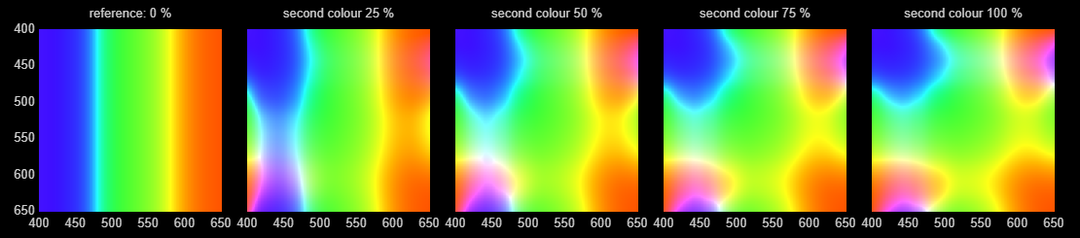
ننتقل من الرسوم التوضيحية إلى فضاء الألوان الكامل: نزيل التعزيز والتخفيف التوضيحيين للتشبّع ونجمع الألوان كما هي. نبدأ بالإنسان. المربع الأول هو المرجع (اللون الثاني ممزوج بنسبة 0 %، أي يبقى اللون الأول النقي)، وفي بقية المربعات تبلغ حصة اللون الثاني 25 و50 و75 و100%. المحور الأفقي هو λ1 (اللون الأول، الوزن 100%)، والمحور الرأسي هو λ2 (اللون الثاني، الوزن p من الأول)، وكلا المحورين 400–650 نانومتر. والمنبّه هو مجموع خطين طيفيين (بقدرة 1 وp)، وتُجمع استجابات مخاريط S/M/L له، ويُستخلص اللون من الاستجابة الإجمالية (بسطوع ثابت).
7. فضاء ألوان الدجاجة لخلائط لونين طيفيين #
الآن الأمر نفسه للدجاجة. المربعات مبنية بالطريقة نفسها كما للإنسان: مرجع بنسبة 0 % من اللون الثاني وأربعة مربعات بنسبة 25 و50 و75 و100%، وكلا المحورين 400–650 نانومتر. تُجمع استجابات المخاريط الأربعة (V/S/M/L)؛ ويُطابَق اللون الناتج عن جزء S/M/L مع ألوان الدجاجة في المخططات الأخرى، من دون تعزيز أو تخفيف إضافيين للتشبّع. ويُعرض UV بالضجيج الذي تُحدَّد كثافته بالاستجابة الإجمالية لمخروط V.
8. مقارنة فضاءي ألوان الإنسان والدجاجة لخلائط لونين طيفيين #
والآن صار كل شيء جاهزًا لنمذجة فضاء الألوان الكامل للدجاجة ومقارنة ما يختلف فيه عن فضاء الإنسان. الإنسان معروض على اليسار والدجاجة على اليمين: المحور الأفقي هو λ1 (اللون الأول)، والمحور الرأسي هو λ2 (اللون الثاني)، وكلا المحورين 400–650 نانومتر. في الرسم المتحرك تزداد نسبة اللون الطيفي الثاني المُضاف بسلاسة من 0 إلى 100% ثم تتناقص عائدة بسلاسة مماثلة. والمنبّه هو مجموع استجابات مخاريط S/M/L عند الإنسان ومخاريط V/S/M/L عند الدجاجة؛ ويُطابَق اللون المستند إلى استجابات الدجاجة مع ألوان الدجاجة في المخططات الأخرى، ويُعرض UV بالضجيج الذي تُحدَّد كثافته بالاستجابة الإجمالية لمخروط V.
نتوقف هنا مؤقتًا عن الحديث عن اللون. وفي المقالة القادمة سنتناول الجزء الثاني: سنتحدث عن زوايا رؤية الدجاجة وعن رؤيتها بالعينين معًا (فعيناها في جانبي الرأس وتستطيعان التحرك مستقلتين إحداهما عن الأخرى، فتوسّعان مجال الرؤية وتفقدان الرؤية بالعينين معًا، وعندما تتجه العينان معًا إلى الأمام تعود منطقة الرؤية بالعينين)، وعن حدة الإبصار وكيف تتغير من مركز مجال الرؤية إلى الأطراف، وعن كيفية تركيز الدجاجة في هذه الظروف، وكذلك عن كيفية إعادة الدماغ بناء صورة متماسكة للعالم المحيط من كل هذا. ثم نجمع كل شيء معًا: الرؤية اللونية في هذه المقالة، وهندسة الرؤية، وحدة الإبصار، في نموذج يتيح للإنسان أن ينظر إلى ما حوله بعيني فرخ.
النسخ التفاعلية الأصلية لجميع المخططات (تُرسم في المتصفح بلغة JavaScript) مع الشروح مجموعة في النسخة المختصرة من المقالة (بالإنجليزية).
المراجع #
تطور الرؤية اللونية لدى الفقاريات #
- Bowmaker J.K. Evolution of colour vision in vertebrates // Eye. 1998. Vol. 12, Pt. 3b. P. 541–547. https://doi.org/10.1038/eye.1998.143 #
- Bowmaker J.K. Evolution of vertebrate visual pigments // Vision Research. 2008. Vol. 48, No. 20. P. 2022–2041. https://doi.org/10.1016/j.visres.2008.03.025 #
- Baden T., Osorio D. The retinal basis of vertebrate color vision // Annual Review of Vision Science. 2019. Vol. 5. P. 177–200. https://doi.org/10.1146/annurev-vision-091718-014926 #
- Shi Y., Yokoyama S. Molecular analysis of the evolutionary significance of ultraviolet vision in vertebrates // Proceedings of the National Academy of Sciences. 2003. Vol. 100, No. 14. P. 8308–8313. https://doi.org/10.1073/pnas.1532535100 #
عنق الزجاجة الليلي وتناقص الأوبسينات لدى الثدييات #
- Gerkema M.P., Davies W.I.L., Foster R.G., Menaker M., Hut R.A. The nocturnal bottleneck and the evolution of activity patterns in mammals // Proceedings of the Royal Society B. 2013. Vol. 280, No. 1765. 20130508. https://doi.org/10.1098/rspb.2013.0508 #
- Borges R., Johnson W.E., O'Brien S.J. et al. Adaptive genomic evolution of opsins reveals that early mammals flourished in nocturnal environments // BMC Genomics. 2018. Vol. 19. P. 121. https://doi.org/10.1186/s12864-017-4417-8 #
- Davies W.I.L., Collin S.P., Hunt D.M. Molecular ecology and adaptation of visual photopigments in craniates // Molecular Ecology. 2012. Vol. 21, No. 13. P. 3121–3158. https://doi.org/10.1111/j.1365-294X.2012.05617.x #
تطور الرؤية الثلاثية الألوان لدى الرئيسيات #
- Dulai K.S., von Dornum M., Mollon J.D., Hunt D.M. The evolution of trichromatic color vision by opsin gene duplication in New World and Old World primates // Genome Research. 1999. Vol. 9, No. 7. P. 629–638. https://doi.org/10.1101/gr.9.7.629 #
- Carvalho L.S., Pessoa D.M.A., Mountford J.K., Davies W.I.L., Hunt D.M. The genetic and evolutionary drives behind primate color vision // Frontiers in Ecology and Evolution. 2017. Vol. 5. P. 34. https://doi.org/10.3389/fevo.2017.00034 #
الرؤية الوسيطة #
- Zele A.J., Cao D. Vision under mesopic and scotopic illumination // Frontiers in Psychology. 2015. Vol. 5. P. 1594. https://doi.org/10.3389/fpsyg.2014.01594 #
العدسة بوصفها مرشِّحًا للأشعة فوق البنفسجية، والرؤية فوق البنفسجية #
- Griswold M.S., Stark W.S. Scotopic spectral sensitivity of phakic and aphakic observers extending into the near ultraviolet // Vision Research. 1992. Vol. 32, No. 9. P. 1739–1743. https://doi.org/10.1016/0042-6989(92)90166-G #
- Hunt D.M., Carvalho L.S., Cowing J.A. et al. Spectral tuning of shortwave-sensitive visual pigments in vertebrates // Photochemistry and Photobiology. 2007. Vol. 83, No. 2. P. 303–310. https://doi.org/10.1562/2006-06-27-IR-952 #
- Tan Z., Sun W., Chen T.-W., Kim D., Ji N. Neuronal representation of ultraviolet visual stimuli in mouse primary visual cortex // Scientific Reports. 2015. Vol. 5. 12597. https://doi.org/10.1038/srep12597 #
التغيرات العمرية في نفاذ العدسة #
- Weale R.A. Age and the transmittance of the human crystalline lens // The Journal of Physiology. 1988. Vol. 395. P. 577–587. https://doi.org/10.1113/jphysiol.1988.sp016935 #
- Kessel L., Lundeman J.H., Herbst K., Andersen T.V., Larsen M. Age-related changes in the transmission properties of the human lens and their relevance to circadian entrainment // Journal of Cataract & Refractive Surgery. 2010. Vol. 36, No. 2. P. 308–312. https://doi.org/10.1016/j.jcrs.2009.08.035 #
- Artigas J.M., Felipe A., Navea A., Fandiño A., Artigas C. Spectral transmission of the human crystalline lens in adult and elderly persons // Investigative Ophthalmology & Visual Science. 2012. Vol. 53, No. 7. P. 4076–4084. https://doi.org/10.1167/iovs.12-9471 #
انقباض الحدقة الشيخي وإضاءة الشبكية #
- Winn B., Whitaker D., Elliott D.B., Phillips N.J. Factors affecting light-adapted pupil size in normal human subjects // Investigative Ophthalmology & Visual Science. 1994. Vol. 35, No. 3. P. 1132–1137. PMID: 8125724. #
الحساسية الطيفية لمخاريط الإنسان #
- Smith V.C., Pokorny J. Spectral sensitivity of the foveal cone photopigments between 400 and 500 nm // Vision Research. 1975. Vol. 15, No. 2. P. 161–171. https://doi.org/10.1016/0042-6989(75)90203-5 #
- Stiles W.S., Burch J.M. N.P.L. colour-matching investigation: final report (1958) // Optica Acta. 1959. Vol. 6, No. 1. P. 1–26. https://doi.org/10.1080/713826267 #
- Stockman A., MacLeod D.I.A., Johnson N.E. Spectral sensitivities of the human cones // Journal of the Optical Society of America A. 1993. Vol. 10, No. 12. P. 2491–2521. https://doi.org/10.1364/JOSAA.10.002491 #
- Stockman A., Sharpe L.T. The spectral sensitivities of the middle- and long-wavelength-sensitive cones derived from measurements in observers of known genotype // Vision Research. 2000. Vol. 40, No. 13. P. 1711–1737. https://doi.org/10.1016/S0042-6989(00)00021-3 #
الحساسية الطيفية والأصباغ البصرية #
- Bowmaker J.K., Knowles A. The visual pigments and oil droplets of the chicken retina // Vision Research. 1977. Vol. 17, No. 7. P. 755–764. https://doi.org/10.1016/0042-6989(77)90117-1 #
- Govardovskii V.I., Zueva L.V. Visual pigments of chicken and pigeon // Vision Research. 1977. Vol. 17, No. 4. P. 537–543. https://doi.org/10.1016/0042-6989(77)90052-9 #
- Bowmaker J.K., Heath L.A., Wilkie S.E., Hunt D.M. Visual pigments and oil droplets from six classes of photoreceptor in the retinas of birds // Vision Research. 1997. Vol. 37, No. 16. P. 2183–2194. https://doi.org/10.1016/S0042-6989(97)00026-6 #
- Prescott N.B., Wathes C.M. Spectral sensitivity of the domestic fowl (Gallus g. domesticus) // British Poultry Science. 1999. Vol. 40, No. 3. P. 332–339. https://doi.org/10.1080/00071669987412 #
الرؤية الرباعية الألوان والرؤية اللونية #
- Osorio D., Vorobyev M., Jones C.D. Colour vision of domestic chicks // Journal of Experimental Biology. 1999. Vol. 202, No. 21. P. 2951–2959. https://doi.org/10.1242/jeb.202.21.2951 #
- Olsson P., Lind O., Kelber A. Bird colour vision: behavioural thresholds reveal receptor noise // Journal of Experimental Biology. 2015. Vol. 218, No. 2. P. 184–193. https://doi.org/10.1242/jeb.111187 #
مراجعات ونمذجة #
- Hart N.S. The visual ecology of avian photoreceptors // Progress in Retinal and Eye Research. 2001. Vol. 20, No. 5. P. 675–703. https://doi.org/10.1016/S1350-9462(01)00009-X #
- Wilby D., Toomey M.B., Olsson P., Frederiksen R., Cornwall M.C., Oulton R., Kelber A., Corbo J.C., Roberts N.W. Optics of cone photoreceptors in the chicken (Gallus gallus domesticus) // Journal of the Royal Society Interface. 2015. Vol. 12, No. 111. 20150591. https://doi.org/10.1098/rsif.2015.0591 #
مراجعات لآليات دمج إشارات المخاريط #
- Solomon S.G., Lennie P. The machinery of colour vision // Nature Reviews Neuroscience. 2007. Vol. 8, No. 4. P. 276–286. https://doi.org/10.1038/nrn2094 #
تحويل الإشارات المتضادة ودمجها في القشرة #
- Li P., Garg A.K., Zhang L.A. et al. Cone opponent functional domains in primary visual cortex combine signals for color appearance mechanisms // Nature Communications. 2022. Vol. 13. 6344. https://doi.org/10.1038/s41467-022-34020-2 #
- De Valois R.L., Cottaris N.P., Elfar S.D., Mahon L.E., Wilson J.A. Some transformations of color information from lateral geniculate nucleus to striate cortex // Proceedings of the National Academy of Sciences. 2000. Vol. 97, No. 9. P. 4997–5002. https://doi.org/10.1073/pnas.97.9.4997 #
نماذج التطبيع والجمع النسبي لإشارات المخاريط #
- Rezeanu D., Neitz M., Neitz J. From cones to color vision: a neurobiological model that explains the unique hues // Journal of the Optical Society of America A. 2023. Vol. 40, No. 3. P. A1–A8. https://doi.org/10.1364/JOSAA.477227 #
- Neitz J., Neitz M. Neurobiological hypothesis of color appearance and hue perception // Journal of the Optical Society of America A. 2014. Vol. 31, No. 4. P. A195–A207. https://doi.org/10.1364/JOSAA.31.00A195 #
- Vorobyev M., Osorio D. Receptor noise as a determinant of colour thresholds // Proceedings of the Royal Society of London. Series B: Biological Sciences. 1998. Vol. 265, No. 1394. P. 351–358. https://doi.org/10.1098/rspb.1998.0302 #
المؤلف: ymik · 19 نوفمبر 2026