병아리의 눈으로 보는 세상. 1부: 색과 지각
1. 인간과 닭의 색각에 대하여 #
지난번 고양이 시각을 모델링한 글에서 닭의 눈으로 주변을 보여 주겠다고 약속했습니다. 작업을 시작하고 보니 설명을 두 부분으로 나누는 것이 좋겠다는 생각이 들었습니다. 첫 번째는 4색형 색각과 색각에 관한 것이고, 두 번째는 시야각과 양안시, 시력, 초점 맞추기, 그리고 뇌가 주변 세계의 상을 재구성하는 방식에 관한 것이며, 마지막으로 모델 자체, 즉 사람이 부리 너머로 모든 것을 본다는 것이 어떤 느낌인지 이해해 보려고 시도할 수 있게 해 주는 모델에 관한 것입니다.
그리고 그 과정에서 오래된 철학적 질문에도 답해 보려고 합니다. “내가 빨강으로 경험하는 것을 다른 사람은 초록으로 경험하는 것이 가능할까? 그 사람 자신도, 나도, 어떤 외부 관찰자도 결코 알 수 없는 방식으로?” 먼저 인간이 세상을 어떻게 보는지, 더 정확히는 이 글의 주제인 색각의 흥미로운 특징들에서부터 시작해 봅시다.
역사적으로 육지로 올라온 사지동물(양서류, 파충류, 조류, 포유류)의 대부분은 4색형 색각을 가지고 있습니다. 즉 파랑, 빨강, 초록뿐 아니라 자외선도 별개의 색으로 구별할 수 있습니다1–4.
그러나 인류의 역사적 조상은 이 조합에서 절반의 색을 구별하는 능력을 잃었습니다. 대부분의 포유류는 색을 감지하는 시각 수용체가 두 종류뿐이며2,7, 청록색을 보는 능력과 빨강과 초록을 구별하는 능력을 잃었습니다. 이런 상실의 이유에 대한 주된 설명은 바로 이 조상이 야행성 생활을 했고 이 색들이 전혀 필요하지 않았다는 것입니다5,6.
이후 포유류 가운데 주행성 생활을 하게 되어 영장류가 된 무리는 어쩐 일인지 빨강과 초록 색조를 구별할 필요가 생겼습니다(이에 대해서는 몇 가지 서로 다른 가설이 있습니다). 돌연변이의 결과로 빨강 수용체가 둘로 갈라졌고8,9, 새로운 유형의 수용체는 감도 영역이 더 짧은 파장 쪽에 놓여 우리가 초록 원추세포라고 부르는 것이 되었습니다(양서류와 파충류 같은 다른 동물의 청록 수용체와 혼동하지 마세요! 이 점은 나중에 다시 다루겠습니다). 그리고 빨강과 초록 수용체의 감도 영역 차이가 그리 크지 않음에도 영장류는 빨강과 초록 색조를 구분하는 능력을 얻었습니다. 게다가 노랑과 주황이라는 새로운 색도 생겼습니다.
덧붙여 간상세포도 언급할 만합니다. 망막에 있는 또 다른 종류의 수용체입니다. 간상세포는 매우 민감하며 주로 황혼 무렵이나 약한 빛, 곧 원추세포에 광자가 충분히 도달하지 않는 조건에서 작동합니다. 낮의 밝은 빛 아래에서는 간상세포가 “눈이 멀어”(포화되어) 색각에는 거의 관여하지 않습니다. 그럼에도 빛의 세기가 낮을 때, 원추세포와 간상세포가 모두 작동하는 박명 영역에서는 간상세포가 색각을 개선하는 데 기여할 수 있으며, 네 번째 신호를 더합니다10. 간상세포는 청록 색조에 가장 민감합니다(최대 약 500 nm).
자, 인간은 보통 3종류의 색 수용체를 가지며, 이를 S, M, L 또는 파랑, 초록, 빨강 원추세포라고 부릅니다. 색각에 편차가 있는 사람들도 있습니다. 일부는 한 종류의 원추세포가 완전히 없어 2색형 색각이 나타납니다. L이 없으면 적색맹(제1색맹), M이 없으면 녹색맹(제2색맹), S가 없으면 청색맹(제3색맹)입니다. 더 흔한 것은 원추세포는 있지만 감도가 이동한 경우입니다. 가장 흔한 녹색약(제2색약)에서는 초록 M 원추세포가 빨강 쪽, 즉 L 가까이로 이동해 있고, 적색약(제1색약)에서는 반대로 빨강 L 원추세포가 초록 쪽으로 이동해 있습니다. 두 경우 모두 M과 L의 곡선이 가까워져 빨강과 초록의 구별이 좋아지는 것이 아니라 나빠집니다.
일부 사람에게는 네 번째 종류의 원추세포가 있을 수 있는데, 대개 L 또는 M의 이동된 변이형이며, 이것이 진정한 4색형 색각을 만들어 냅니다. 즉 보통의 3색형 색각자에게는 똑같아 보이는 스펙트럼의 초록–노랑–빨강 부분의 색조를 구별하는 능력입니다.
인간은 자외선을 보지 못합니다. 적어도 천연 UV 필터인 수정체를 제거하지 않는 한은 그렇습니다. 수정체를 제거했거나(무수정체안) 백내장 수술에서 UV 필터가 없는 인공 수정체로 바꾼 사람들은 370 nm까지의 자외선 영역을 보기 시작합니다11. 다만 이것은 망막에 그리 좋지 않으며, 이 경우 의사들은 선글라스 착용을 강력히 권합니다. 하지만 그런 UV 필터가 없어서 파랑 수용체로 자외선 영역의 일부를 충분히 볼 수 있는 포유류도 있습니다. 예를 들면 생쥐입니다12,13.
그런데 수정체의 투과율은 나이에 크게 좌우됩니다. 어린이(약 10세까지)의 수정체는 아직 매우 투명해서, 315–320 nm 부근의 “창”에서는 빛의 최대 4분의 3이 통과하고, 320–400 nm 범위의 상당 부분도 망막에 도달하며, 근자외선을 옅은 보랏빛으로 볼 수 있습니다. 그러나 수정체는 시간이 지나며 색소를 축적하고 이 창은 닫힙니다. 젊은 사람들(20–29세)에서는 UV-A가 겨우 몇 퍼센트만 통과하고 가시 스펙트럼의 하한은 380–390 nm로 이동합니다. 중년이 되면 근자외선은 거의 완전히 차단되고, 60–70세에는 한계가 가시 영역 안으로 들어와 400–420 nm, 혹은 그 이상이 됩니다14,15.
게다가 손상되는 것은 자외선만이 아닙니다. 나이가 들면 수정체가 누렇게 변하며 스펙트럼의 짧은 파장 쪽 전체, 즉 보라와 파랑 색조를 더 잘 통과시키지 못합니다. 예를 들어 40–59세 집단에서 60세 이상 집단으로 넘어가면 420 nm에서의 투과율은 약 40% 떨어지고, 노란색인 580 nm에서는 겨우 18% 떨어집니다16. 그래서 노인에게는 짙은 보라색이 거의 어두운 회색으로 보일 수 있습니다. 여기에 나이에 따른 동공 축소까지 고려하면, 70–80세에는 망막이 파랑 파장(약 460 nm)에서 20세 때보다 몇 분의 일 정도의 빛만 받게 됩니다17.
인간의 색각으로 돌아가 보면, 그것은 다음과 같은 모습입니다.
왼쪽 위에는 순수한 분광 파장에 대한 인간의 S, M, L 수용체 감도 그래프가 있습니다18–21. 오른쪽 위는 전체 색 영역의 애니메이션으로, 인간이 볼 수 있는 모든 색을 보여 줍니다(음, 적어도 디스플레이가 재현할 수 있는 범위에서는요). 아래의 5개 띠는 채도를 달리했을 때의 인간의 색 영역을 보여 줍니다.
마지막 두 도표에 대해서는 따로 설명하겠습니다. 거기에 나오는 용어를 앞으로 계속 쓸 것이기 때문입니다. 색을 부호화할 때는 HSV 모델, 곧 Hue(색상), Saturation(채도), Value(명도)가 편리한 경우가 많습니다.
색상은 색상환 위에서 부호화되며, 빨강, 초록, 파랑은 각자의 극좌표, 즉 색이나 색의 혼합을 가리키는 회전각을 가집니다. 그러한 색상환은 오른쪽 위의 애니메이션에서 볼 수 있습니다.
명도(밝기)는 0에서 100%까지의 선형 값으로 부호화되며, 0은 검정, 100은 가장 밝은 것입니다.
채도는 명도와 마찬가지로 0에서 100%까지로 부호화되며, 채도 0은 뚜렷한 색조가 전혀 없는 상태(회색의 단계), 100%는 가장 선명한 색입니다.
이 글의 뒷부분에서는 채도가 자주 언급될 것이고, 때로는 명도도 언급될 것입니다.
2. 닭의 분광 색 공간 #
닭의 시각 수용체 감도 도표를 살펴봅시다. 닭에게는 인간과 같은 S, M, L 외에 자외선에 민감한 네 번째 종류의 수용체가 있는데, V 원추세포라고 부릅니다22–25,28. 인간 원추세포 감도 그래프와 마찬가지로 모든 곡선은 가장 민감한 수용체의 감도로 정규화되어 있습니다. 닭에서는 인간과 달리 그것이 V입니다.
짧은 설명입니다. 닭의 수용체도 V, S, M, L이라고 부르지만, 이는 파장 범위에 따른 편의상의 명칭일 뿐이며, 같은 이름의 인간 수용체와 계통적으로 가깝다는 뜻이 아닙니다. 유전적으로 닭의 V 원추세포는 우리의 파랑 S 수용체에 해당하며, 다만 더 짧은 파장 영역으로 옮겨 있을 뿐입니다12. 반면 닭의 파랑 S 수용체와 초록 M 수용체는 바로 포유류가 잃어버린 청록 수용체와 초록 수용체입니다2,7. 그리고 닭의 빨강 L 수용체만이 우리의 빨강 수용체와 가까운 관계이며, 여기서 나중에 인간의 초록 M 수용체가 갈라져 나왔습니다. 이에 대해서는 위에서 설명했습니다.
따라서 닭의 수용체 구성은 인간의 것과는 완전히 다르게 짜여 있으며, 색 영역의 모습도 완전히 달라집니다. 앞으로 이 모든 것을 자세히 살펴보겠습니다.

먼저 색의 UV 성분을 어떻게 표시할지 정해 둡시다. 자홍색(마젠타)은 인간 색각에서 이미 빨강과 파랑의 혼합색으로 ‘쓰이고’ 있지만, 자외선도 어떻게든 표시해야 합니다. 이제부터 자외선을 표시하는 데는 컬러 노이즈를 쓰겠습니다. 다른 색과 섞일 때 노이즈는 섞이는 대상 색의 밝기와 채도를 모두 조금 올리거나 내립니다. 노이즈의 밀도는 V 원추세포에 대한 자극의 세기를 나타냅니다.
아래 도표는 기본색(빨강, 노랑, 초록, 시안, 파랑, 마젠타)을 자외선과 섞은 것입니다. 각 색마다 세로축은 밝기로, 아래가 0, 위가 100%입니다. 가로축은 자외선의 증가로, 0에서 100%까지입니다.
이제 인간과 닭의 지각 곡선을 한 도표에서 비교해 봅시다.
지각 도표에서 인간의 곡선은 위에, 닭의 곡선은 아래에 있고, 그 사이에 스펙트럼의 색이 띠로 그려져 있습니다.
곡선에서 알 수 있듯이, 다른 원추세포의 감도와 비교하면 닭의 자외선 감도가 훨씬 높습니다. 그래서 배경의 UV 조명 수준이 달라지면 닭은 나머지 스펙트럼 색도 다르게 보게 됩니다.
이것을 모델링해 봅시다.
그런데 한 가지 더 중요한 세부 사항을 짚어 둘 필요가 있습니다. 인간도 닭도 인접한 순수 분광색을 구별하는 것은 한 종류 또는 여러 종류의 원추세포 흥분 수준을 비교함으로써입니다. 신호가 하나의 원추세포 영역에만 들어가는 경우, 예컨대 인간에게 장파장의 빨강이나 단파장의 파랑이 그렇듯이, 인접한 색은 구별할 수 없고 밝기만 달라집니다.
중간색을 지각할 수 있게 되는 것은 둘 이상의 서로 다른 종류의 수용체의 흥분 차이를 측정할 수 있을 때뿐입니다.
예를 들어 대부분의 포유류에서는 청록 수용체와 초록 수용체를 잃은 탓에, 빛이 S의 감도 영역이나 L의 감도 영역, 혹은 둘이 겹치는 영역 가운데 어느 하나에만 들어갑니다. 그 결과 개는 파랑과 노랑, 그리고 S와 L이 겹치는 영역에서의 파랑에서 노랑으로 가는 그러데이션만 봅니다. 인간은 M 원추세포가 더해지면서 초록과 빨강의 차이도 볼 수 있게 되지만, 초록–빨강 영역에서 인접한 색조를 구별하는 분해능은 해당 파장에서의 M과 L의 흥분 수준 차이에 직접적으로 좌우됩니다.
이는 곧, 분광색이 수용체 반응의 차이가 작은 영역에서 서로 다른 두 종류의 원추세포에 걸릴 때는, 인접한 색조가 그 색과 구별되는 정도가 신호 차이가 큰 영역에 걸릴 때보다 나쁘다는 뜻입니다.
닭의 S, M, L 원추세포의 감도 최댓값 분포는 인간의 것과 다르고, 신호를 포착하는 폭도 다릅니다. 그렇다면 순수한 분광 색조 사이의 차이를 지각하는 강도도 달라질 수밖에 없습니다.
이것은 참고로, 로크까지 거슬러 올라가며 시드니 슈메이커와 네드 블록이 현대적인 형태로 정식화한 역전된 스펙트럼(inverted spectrum)에 관한 오래된 질문에 어느 정도 실마리를 줍니다. “나의 빨강 경험이 당신의 초록 경험과 현상적으로 동일하다는 것이 가능할까? 우리의 행동적, 기능적 상태는 모두 동일한데도?” 순수한 분광색의 지각은 물리적 파장과 수용체에서 오는 뉴런의 흥분 수준에 묶여 있습니다.
인간의 전체 스펙트럼 지각 상을 주어진 것으로 받아들인다면(결국 모든 모니터는 이 스펙트럼에 최대한 맞도록 보정됩니다), 이 스펙트럼 띠를 인간과 닭의 지각 수준 차이에 따라 다시 보정하여 다음과 같은 도표를 얻을 수 있습니다.
도표에서 보라색 영역에 뚜렷한 어두운 띠를 볼 수 있습니다. 스펙트럼의 보라색은 짧은 파장이 S 원추세포뿐 아니라 L 원추세포도 약하게 자극하기 때문에 인간에게 붉은빛이 도는 파랑으로 보입니다. 빨강과 파랑 빛을 섞어 같은 S + L 조합을 만들면 스펙트럼에 없는 자홍색이 됩니다. 닭에게는 이것이 적용되지 않습니다. V형 수용체를 가지고 있기 때문인데, 이에 대해서는 뒤에서 더 자세히 다루겠습니다.
도표의 아래 줄에는 왜곡의 바탕이 된 두 곡선이 나와 있습니다(가로축은 색상 R, Y, G, C, B, M). 주황 곡선은 색조의 흐림 정도입니다(곡선이 높을수록 닭은 그 색에 인접한 색조를 더 잘 구별하지 못합니다). 하늘색 곡선은 인간에 대한 색의 채도입니다(낮을수록 닭은 구별에서 인간에게 더 뒤처집니다). 이 곡선들을 보면 닭의 식별력이 고르지 않다는 것을 알 수 있습니다. 파랑(약 450 nm), 초록(510–520 nm), 노랑-주황(570–580 nm) 영역에서는 닭이 인접한 색조를 인간보다 눈에 띄게 잘 구별합니다. 예를 들어 인접한 두 노랑을 닭은 인간보다 대략 두 배 정확하게 구별할 것입니다. 그러나 하늘색과 시안(470–500 nm), 주황과 빨강(600–640 nm) 영역에서는 인간보다 훨씬 나쁘게 색조를 구별합니다. 스펙트럼의 보라–파랑 가장자리(430 nm 이하)에서는 둘 다 식별력이 약합니다.
순수한 분광 색조에 대해 인간과 닭의 색각이 갖는 분해능을 보여 주는 도표를 그려 봅시다.
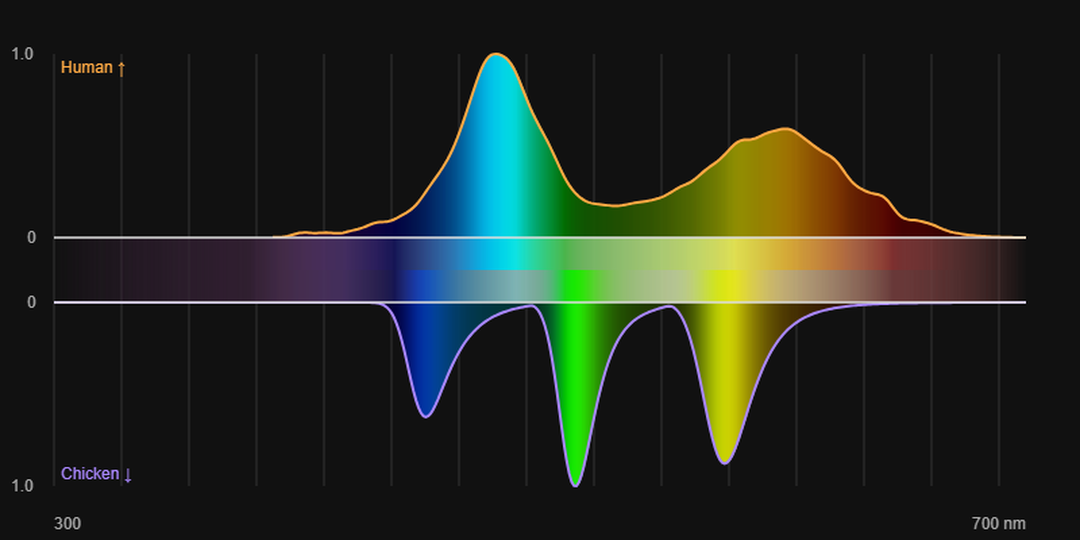
가운데의 띠에는 인접한 색을 얼마나 강하게 구별하는지에 대한 비교가 나와 있습니다. 인간이 색조를 잘 구별하지 못할수록 그 자리의 스펙트럼은 더 바래게 표시됩니다(가운데 위쪽 띠). 닭도 마찬가지입니다(가운데 아래쪽 띠).
수용체 잡음 제한(Receptor Noise Limited, RNL) 모델은 미샤 보로비요프와 대니얼 오소리오가 제안한 것으로35, 동물, 특히 4색형 색각을 가진 동물—조류, 파충류 등26,27—의 색 역치를 예측하는 표준 도구입니다.
이 모델의 기본 가정은 두 색을 구별하는 역치가 이후의 신경 단계가 아니라 오직 광수용체의 잡음(산탄 잡음 + 신경 잡음)에 의해 결정된다는 것입니다. 색 거리는 원추세포 종류별 잡음으로 정규화된 공간에서 계산됩니다.
이 모델은 구체적인 대립 채널에 대한 지식을 필요로 하지 않으므로, 대립 처리의 신경생리학이 잘 알려지지 않은 종에 특히 유용합니다.
3. 인간과 닭의 색상환을 그려 보자 #
인간의 색상환은 간단하게 만들어집니다. 세 가지 기본색이 있고, 그중 두 가지씩 짝지으면 인간이 보는 색이 구성됩니다.
그러나 인간에게는 가상의 색이 하나 있습니다. 빨강과 파랑의 혼합으로 자홍색(마젠타)이 되는 색입니다. 스펙트럼에는 이 색에 해당하는 파장이 없으므로, 이 색의 감각은 파랑과 빨강 원추세포의 흥분 신호를 더하는 방식으로 바로 뇌 속에서 생겨납니다. 여기에 초록 원추세포의 신호까지 있으면 인간은 흰색의 감각을 얻습니다.
그런데 닭에게는 추가적인 원추세포가 있습니다. 이것은 무엇을 의미할까요?
- 첫째, 새로운 가상의 색들이 생겨야 합니다.
- UV-초록(M 원추세포의 감도는 V 원추세포의 감도와 거의 겹치지 않습니다).
- UV-빨강(마찬가지로 L 원추세포의 감도는 V 원추세포의 감도와 겹치지 않습니다).
- 둘째, 새로운 전이색들이 생겨야 합니다. 빨강과 초록 사이에 있는 우리의 노랑이나, 초록과 파랑 사이의 시안과 같은 것입니다.
- 그리고 마지막으로, 흰색의 감각은 네 가지 원추세포의 신호가 모두 균형을 이룰 때에만 생겨야 합니다. 받아들이는 신호에 자외선이 없다면(예를 들어 색온도가 “화이트”인 인공 조명 아래), 파랑, 빨강, 초록 분광색만의 혼합을 닭은 어떤 새롭고 독립된 색으로 지각해야 합니다.
색상환을 가장 단순한 방식으로 모델링해 봅시다. 원주 위에 빨강, 초록, 파랑, 자외선, 초록 + UV, 빨강 + UV를 차례로 놓고, 다시 파랑을 놓아서 하나의 원에서 가능한 모든 조합을 둘씩 짝지어 얻도록 합니다. 더 잘 드러나도록 전이색에 대해서는 빛의 표현 강도를 바꿉니다. 색조의 구별성이 인간보다 높은 곳에서는 채도를 높이고, 낮은 곳에서는 반대로 낮춥니다. 그리고 자외선은 이전과 마찬가지로 컬러 노이즈로 나타냅니다.
인간은 대체로 UV를 보지 못하므로, 오른쪽에는 두 색의 혼합에서 나온 색 성분만 남습니다.
4. 두 순수 분광색이 섞일 때(예를 들어 반사광에서) 닭에게 일어나는 일 #
하지만 색상환을 이렇게 소박하게 그리는 방식에는 문제가 하나 있습니다. 우리도, 닭도 대부분의 경우 순수한 분광선이 아니라 여러 주파수의 빛이 한꺼번에 섞인 것을 지각합니다. 게다가 하나의 주파수가 여러 종류의 원추세포를 한꺼번에 흥분시킬 수 있습니다. 위의 스펙트럼에서 볼 수 있었듯이요. 따라서 광선의 조합은 채널 V, S, M, L별 단순한 합이 아니라 더 복잡한 무언가입니다.
여기서 뇌가 센서의 신호를 어떻게 통합하는지에 대해 조금 이야기할 필요가 있습니다. 각 수용체가 알려 주는 것은 단 하나, 자신이 얼마나 강하게 흥분했는가뿐입니다. 빛의 파장이 무엇이었는지 원추세포는 알지 못하므로, 수용체 하나의 신호만으로는 보이는 분광색에 대한 정확한 정보를 얻을 수 없습니다.
색의 감각은 서로 다른 원추세포에서 온 신호들이 서로 비교될 때 뇌에서 생겨납니다. 수용체 열의 신호는 세 개의 대립 채널30–32, 즉 빨강–초록(L 대 M), 노랑–파랑(S 대 L과 M의 합), 밝기(L + M)로 재구성되고, 그다음 이 채널들이 다시 섞이면서 우리에게 익숙한 색조의 감각이 만들어집니다. 아주 단순화하면 다음과 같습니다.
A = 0.5·L + 0.5·M, RG = L − M, YB = S − 0.5·(L + M)
RG와 YB의 부호와 비율이 색조를33,34, A가 밝기를 정하며, RG = YB = 0이면 흰색이나 회색이 됩니다. 예를 들어 L = 100, M = 50, S = 10이라고 합시다. 그러면 A = 75, RG = +50(빨강 쪽), YB = 10 − 75 = −65(노랑 쪽)입니다. 빨강에 노랑을 더하면 채도가 높은 주황이 됩니다.
도표에는 순간적인 지각 모델이 쓰였습니다. 즉 밝기가 일정하고 중립적인 흰색에 순응한 상태에서의 자극에 대한 반응입니다. 실제 생활에서는 색 신호가 시간이 지나면서 누적되고, 뉴런이 색에 과부하될 수도 있습니다. 즉 그 색에 순응하여 기준을 우세한 색 쪽으로 옮기는 것입니다(색안경 효과: 분홍색 안경을 끼고 오래 보고 있으면 얼마 뒤 완전한 색 지각이 돌아오지만, 인접한 색조를 구별하는 분해능은 물론 떨어집니다).
계시 대비나 음성 잔상(보색 잔상) 같은 착시는 여기서 비롯됩니다. 빨간 것을 한동안 바라본 뒤 흰 종이를 보면 초록빛이 도는 청록색 얼룩이 보일 것입니다.
이것이 인간에게 어떻게 작동하는지는 지금 바로 디스플레이에서 확인할 수 있습니다. 화면의 이미지는 R, G, B(그리고 드물게 W) 서브픽셀의 빛을 더하여 만들어집니다.
그런데 닭이 같은 색 감각을 얻으려면, 반응이 약한 분광색은 더 많이, 반응이 강하면 더 적게 취해야 합니다. 그래서 합산 결과를 색 감도 곡선에 따라 다시 계산해야 합니다.
도표를 그리기 위해 두 순수 분광색(즉 단 하나의 파장의 빛)을 짝지어 취하고, 여러 비율로 섞어서 V/S/M/L 원추세포의 반응으로부터 자극을 계산합니다. 먼저 인간의 결과를 얻고, 그다음 닭에 대한 상응하는 결과를 고릅니다.
UV는 이전처럼 컬러 노이즈로 나타냅니다(밀도는 UV 원추세포의 반응으로 정해집니다). 해당 영역에서 닭이 색을 인간보다 더 강하게 지각하면 색을 더 선명하게, 그렇지 않으면 더 옅게 만듭니다.
축: 가로축과 세로축은 순색의 파장 λ1과 λ2(300–650 nm, 자외선 포함)이며, 각 칸에는 이들을 RGB 채널에서 50 : 50으로 섞은 결과가 나와 있습니다.
인간의 경우 이것은 두 색의 단순 평균입니다. 인간은 자외선을 보지 못합니다. 약 400 nm의 왼쪽에서는 파랑 채널이 그냥 줄어들고(약 370 nm에서 0이 됩니다), 다른 채널은 변하지 않습니다.
오른쪽에는 혼합에 따른 색 균형의 이동이 나와 있습니다. 빨강 색조에서는 혼합에서 세로축(λ2)의 색이 우세하고, 파랑 색조에서는 가로축(λ1)의 색이 우세합니다. 밝기는 이동의 크기입니다.
5. 두 분광색을 섞은 색상환 #
같은 그림을 다른 방식, 즉 색상환의 형태로도 나타낼 수 있으며, 아울러 섞어 넣는 순수 분광색의 비율을 달리할 수도 있습니다. 각 환에서 각도는 첫 번째 색의 파장 λ1(400–650 nm, 왼쪽 끝에서 시계 방향)을, 반지름은 두 번째 색의 파장 λ2(중심이 400 nm, 가장자리가 650 nm)를 나타냅니다. 첫 번째 색은 가중치 100%로, 두 번째 색은 첫 번째 색의 p = 25, 50, 75, 100% 가중치로 취합니다. 위에는 인간(RGB의 가중 평균), 아래에는 닭이 나와 있습니다. 색의 채도는 지각 가중치에 따라 바뀌었고, UV는 노이즈로 표시됩니다(밀도는 혼합에 대한 UV 원추세포의 감도를 따릅니다).
6. 두 분광색의 혼합에 대한 인간의 색 공간 #
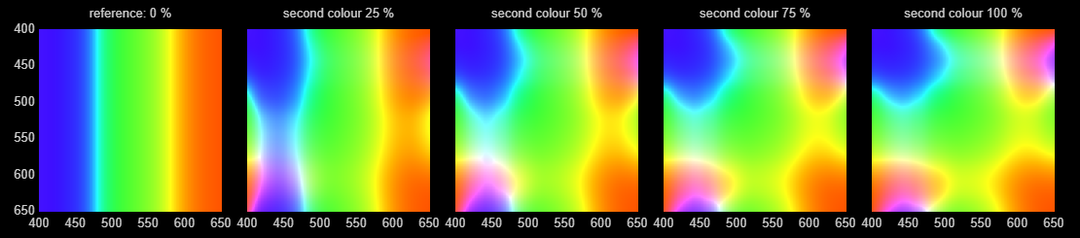
삽화에서 전체 색 공간으로 넘어갑니다. 채도의 설명용 강조와 약화를 없애고 색을 있는 그대로 더합니다. 인간부터 시작합니다. 첫 번째 정사각형은 기준입니다(두 번째 색이 0 % 섞임, 즉 순수한 첫 번째 색이 남습니다). 나머지 정사각형에서는 두 번째 색의 비율이 25, 50, 75, 100%입니다. 가로축은 λ1(첫 번째 색, 가중치 100%), 세로축은 λ2(두 번째 색, 첫 번째 색에 대한 가중치 p)이며, 두 축 모두 400–650 nm입니다. 자극은 두 분광선의 합(세기 1과 p)이고, 이에 대한 S/M/L 원추세포의 반응이 더해지며, 색은 합산 반응으로부터 얻어집니다(밝기는 일정).
7. 두 분광색의 혼합에 대한 닭의 색 공간 #
이제 닭에 대해 같은 것을 해 봅시다. 정사각형은 인간의 경우와 같은 방식으로 만들어졌습니다. 두 번째 색이 0 %인 기준과 25, 50, 75, 100%의 네 정사각형이며, 두 축 모두 400–650 nm입니다. 네 원추세포(V/S/M/L)의 반응이 더해지고, S/M/L 부분의 색은 다른 도표에 나온 닭의 색에 대응시켰으며, 채도의 추가적인 강조나 약화는 없습니다. UV는 밀도가 V 원추세포의 합산 반응으로 정해지는 노이즈로 표시됩니다.
8. 두 분광색의 혼합에 대한 인간과 닭의 색 공간 비교 #
이제 닭의 전체 색 공간을 모델링하고 그것이 인간의 것과 어떻게 다른지 비교할 준비가 모두 되었습니다. 왼쪽이 인간, 오른쪽이 닭입니다. 가로축은 λ1(첫 번째 색), 세로축은 λ2(두 번째 색)이며, 두 축 모두 400–650 nm입니다. 애니메이션에서는 두 번째 분광색의 혼입이 0에서 100%까지 부드럽게 늘어났다가 똑같이 부드럽게 줄어듭니다. 자극은 인간에서는 S/M/L 원추세포, 닭에서는 V/S/M/L 원추세포의 반응의 합입니다. 닭의 반응에 따른 색은 다른 도표에 나온 닭의 색에 대응시켰고, UV는 밀도가 V 원추세포의 합산 반응으로 정해지는 노이즈로 표시됩니다.
색에 대한 이야기는 여기서 잠시 멈추겠습니다. 다음 글에서는 두 번째 부분을 다룹니다. 닭의 시야각과 양안시(눈은 머리 양옆에 있고 서로 독립적으로 움직일 수 있어서, 시야가 넓어지는 대신 양안시를 잃기도 하고, 두 눈이 모두 앞을 향하면 양안시 영역이 돌아옵니다), 시력과 그것이 시야의 중심에서 주변으로 가면서 어떻게 변하는지, 이런 조건에서 닭이 어떻게 초점을 맞추는지, 그리고 뇌가 이 모든 것으로부터 주변 세계의 일관된 상을 어떻게 재구성하는지에 대해 이야기하겠습니다. 그런 다음 모든 것을 하나로 모읍니다. 이 글의 색각과 시야의 기하학, 그리고 시력을, 사람이 병아리의 눈으로 주변을 볼 수 있게 해 주는 모델로 말입니다.
모든 도표의 인터랙티브 원본(브라우저에서 JavaScript로 그려집니다)은 설명과 함께 글의 축약판(영어)에 모아 두었습니다.
참고문헌 #
척추동물 색각의 진화 #
- Bowmaker J.K. Evolution of colour vision in vertebrates // Eye. 1998. Vol. 12, Pt. 3b. P. 541–547. https://doi.org/10.1038/eye.1998.143 #
- Bowmaker J.K. Evolution of vertebrate visual pigments // Vision Research. 2008. Vol. 48, No. 20. P. 2022–2041. https://doi.org/10.1016/j.visres.2008.03.025 #
- Baden T., Osorio D. The retinal basis of vertebrate color vision // Annual Review of Vision Science. 2019. Vol. 5. P. 177–200. https://doi.org/10.1146/annurev-vision-091718-014926 #
- Shi Y., Yokoyama S. Molecular analysis of the evolutionary significance of ultraviolet vision in vertebrates // Proceedings of the National Academy of Sciences. 2003. Vol. 100, No. 14. P. 8308–8313. https://doi.org/10.1073/pnas.1532535100 #
야행성 병목과 포유류의 옵신 감소 #
- Gerkema M.P., Davies W.I.L., Foster R.G., Menaker M., Hut R.A. The nocturnal bottleneck and the evolution of activity patterns in mammals // Proceedings of the Royal Society B. 2013. Vol. 280, No. 1765. 20130508. https://doi.org/10.1098/rspb.2013.0508 #
- Borges R., Johnson W.E., O'Brien S.J. et al. Adaptive genomic evolution of opsins reveals that early mammals flourished in nocturnal environments // BMC Genomics. 2018. Vol. 19. P. 121. https://doi.org/10.1186/s12864-017-4417-8 #
- Davies W.I.L., Collin S.P., Hunt D.M. Molecular ecology and adaptation of visual photopigments in craniates // Molecular Ecology. 2012. Vol. 21, No. 13. P. 3121–3158. https://doi.org/10.1111/j.1365-294X.2012.05617.x #
영장류 3색형 색각의 진화 #
- Dulai K.S., von Dornum M., Mollon J.D., Hunt D.M. The evolution of trichromatic color vision by opsin gene duplication in New World and Old World primates // Genome Research. 1999. Vol. 9, No. 7. P. 629–638. https://doi.org/10.1101/gr.9.7.629 #
- Carvalho L.S., Pessoa D.M.A., Mountford J.K., Davies W.I.L., Hunt D.M. The genetic and evolutionary drives behind primate color vision // Frontiers in Ecology and Evolution. 2017. Vol. 5. P. 34. https://doi.org/10.3389/fevo.2017.00034 #
박명시 #
- Zele A.J., Cao D. Vision under mesopic and scotopic illumination // Frontiers in Psychology. 2015. Vol. 5. P. 1594. https://doi.org/10.3389/fpsyg.2014.01594 #
UV 필터로서의 수정체와 자외선 시각 #
- Griswold M.S., Stark W.S. Scotopic spectral sensitivity of phakic and aphakic observers extending into the near ultraviolet // Vision Research. 1992. Vol. 32, No. 9. P. 1739–1743. https://doi.org/10.1016/0042-6989(92)90166-G #
- Hunt D.M., Carvalho L.S., Cowing J.A. et al. Spectral tuning of shortwave-sensitive visual pigments in vertebrates // Photochemistry and Photobiology. 2007. Vol. 83, No. 2. P. 303–310. https://doi.org/10.1562/2006-06-27-IR-952 #
- Tan Z., Sun W., Chen T.-W., Kim D., Ji N. Neuronal representation of ultraviolet visual stimuli in mouse primary visual cortex // Scientific Reports. 2015. Vol. 5. 12597. https://doi.org/10.1038/srep12597 #
수정체 투과율의 나이에 따른 변화 #
- Weale R.A. Age and the transmittance of the human crystalline lens // The Journal of Physiology. 1988. Vol. 395. P. 577–587. https://doi.org/10.1113/jphysiol.1988.sp016935 #
- Kessel L., Lundeman J.H., Herbst K., Andersen T.V., Larsen M. Age-related changes in the transmission properties of the human lens and their relevance to circadian entrainment // Journal of Cataract & Refractive Surgery. 2010. Vol. 36, No. 2. P. 308–312. https://doi.org/10.1016/j.jcrs.2009.08.035 #
- Artigas J.M., Felipe A., Navea A., Fandiño A., Artigas C. Spectral transmission of the human crystalline lens in adult and elderly persons // Investigative Ophthalmology & Visual Science. 2012. Vol. 53, No. 7. P. 4076–4084. https://doi.org/10.1167/iovs.12-9471 #
노인성 동공 축소와 망막 조도 #
- Winn B., Whitaker D., Elliott D.B., Phillips N.J. Factors affecting light-adapted pupil size in normal human subjects // Investigative Ophthalmology & Visual Science. 1994. Vol. 35, No. 3. P. 1132–1137. PMID: 8125724. #
인간 원추세포의 분광 감도 #
- Smith V.C., Pokorny J. Spectral sensitivity of the foveal cone photopigments between 400 and 500 nm // Vision Research. 1975. Vol. 15, No. 2. P. 161–171. https://doi.org/10.1016/0042-6989(75)90203-5 #
- Stiles W.S., Burch J.M. N.P.L. colour-matching investigation: final report (1958) // Optica Acta. 1959. Vol. 6, No. 1. P. 1–26. https://doi.org/10.1080/713826267 #
- Stockman A., MacLeod D.I.A., Johnson N.E. Spectral sensitivities of the human cones // Journal of the Optical Society of America A. 1993. Vol. 10, No. 12. P. 2491–2521. https://doi.org/10.1364/JOSAA.10.002491 #
- Stockman A., Sharpe L.T. The spectral sensitivities of the middle- and long-wavelength-sensitive cones derived from measurements in observers of known genotype // Vision Research. 2000. Vol. 40, No. 13. P. 1711–1737. https://doi.org/10.1016/S0042-6989(00)00021-3 #
분광 감도와 시각 색소 #
- Bowmaker J.K., Knowles A. The visual pigments and oil droplets of the chicken retina // Vision Research. 1977. Vol. 17, No. 7. P. 755–764. https://doi.org/10.1016/0042-6989(77)90117-1 #
- Govardovskii V.I., Zueva L.V. Visual pigments of chicken and pigeon // Vision Research. 1977. Vol. 17, No. 4. P. 537–543. https://doi.org/10.1016/0042-6989(77)90052-9 #
- Bowmaker J.K., Heath L.A., Wilkie S.E., Hunt D.M. Visual pigments and oil droplets from six classes of photoreceptor in the retinas of birds // Vision Research. 1997. Vol. 37, No. 16. P. 2183–2194. https://doi.org/10.1016/S0042-6989(97)00026-6 #
- Prescott N.B., Wathes C.M. Spectral sensitivity of the domestic fowl (Gallus g. domesticus) // British Poultry Science. 1999. Vol. 40, No. 3. P. 332–339. https://doi.org/10.1080/00071669987412 #
4색형 색각과 색각 #
- Osorio D., Vorobyev M., Jones C.D. Colour vision of domestic chicks // Journal of Experimental Biology. 1999. Vol. 202, No. 21. P. 2951–2959. https://doi.org/10.1242/jeb.202.21.2951 #
- Olsson P., Lind O., Kelber A. Bird colour vision: behavioural thresholds reveal receptor noise // Journal of Experimental Biology. 2015. Vol. 218, No. 2. P. 184–193. https://doi.org/10.1242/jeb.111187 #
총설과 모델링 #
- Hart N.S. The visual ecology of avian photoreceptors // Progress in Retinal and Eye Research. 2001. Vol. 20, No. 5. P. 675–703. https://doi.org/10.1016/S1350-9462(01)00009-X #
- Wilby D., Toomey M.B., Olsson P., Frederiksen R., Cornwall M.C., Oulton R., Kelber A., Corbo J.C., Roberts N.W. Optics of cone photoreceptors in the chicken (Gallus gallus domesticus) // Journal of the Royal Society Interface. 2015. Vol. 12, No. 111. 20150591. https://doi.org/10.1098/rsif.2015.0591 #
원추세포 신호를 결합하는 기전에 대한 총설 #
- Solomon S.G., Lennie P. The machinery of colour vision // Nature Reviews Neuroscience. 2007. Vol. 8, No. 4. P. 276–286. https://doi.org/10.1038/nrn2094 #
피질에서의 대립색 신호의 변환과 통합 #
- Li P., Garg A.K., Zhang L.A. et al. Cone opponent functional domains in primary visual cortex combine signals for color appearance mechanisms // Nature Communications. 2022. Vol. 13. 6344. https://doi.org/10.1038/s41467-022-34020-2 #
- De Valois R.L., Cottaris N.P., Elfar S.D., Mahon L.E., Wilson J.A. Some transformations of color information from lateral geniculate nucleus to striate cortex // Proceedings of the National Academy of Sciences. 2000. Vol. 97, No. 9. P. 4997–5002. https://doi.org/10.1073/pnas.97.9.4997 #
원추세포 신호의 정규화와 상대적 결합 모델 #
- Rezeanu D., Neitz M., Neitz J. From cones to color vision: a neurobiological model that explains the unique hues // Journal of the Optical Society of America A. 2023. Vol. 40, No. 3. P. A1–A8. https://doi.org/10.1364/JOSAA.477227 #
- Neitz J., Neitz M. Neurobiological hypothesis of color appearance and hue perception // Journal of the Optical Society of America A. 2014. Vol. 31, No. 4. P. A195–A207. https://doi.org/10.1364/JOSAA.31.00A195 #
- Vorobyev M., Osorio D. Receptor noise as a determinant of colour thresholds // Proceedings of the Royal Society of London. Series B: Biological Sciences. 1998. Vol. 265, No. 1394. P. 351–358. https://doi.org/10.1098/rspb.1998.0302 #
저자: ymik · 2026년 11월 19일