小鸡眼中的世界。第一部分:色彩与感知
1. 关于人类和鸡的色觉 #
在上一篇关于猫的视觉建模的文章中,我答应过要展示通过鸡的眼睛看到的周围环境。开始动手之后,我意识到应该把介绍分成两部分:第一部分讲四色视觉和色觉,第二部分讲视角和双眼视觉、视力、对焦,以及大脑如何重建周围世界的画面,最后是模型本身,也就是让人可以尝试理解越过喙看一切是什么感觉的那个模型。
在此过程中,我们还将尝试回答一个古老的哲学问题:“有没有可能,我体验为红色的东西,另一个人体验为绿色——以至于他自己、我、以及任何外部观察者都永远无法发现这一点?”让我们先从人类如何看世界讲起,或者更准确地说,从这篇文章的主题——色觉的有趣特点——讲起。
从历史上看,爬上陆地的大多数四足动物(包括两栖动物、爬行动物、鸟类和哺乳动物)都具有四色视觉,也就是说,它们不仅能分辨蓝、红、绿,还能把紫外线当作一种单独的颜色来分辨1–4。
但人类在历史上的祖先失去了分辨这组颜色中一半颜色的能力:大多数哺乳动物只有两种颜色视觉感受器2,7,失去了看到蓝绿色的能力,也失去了区分红色和绿色的能力。对这种丧失的主要解释是:这位祖先过着夜行的生活,这些颜色对它来说完全没有用处5,6。
后来,哺乳动物中过上昼行生活、成为灵长类的那一支,不知为什么需要区分红色和绿色的色调(对此有几种不同的假说)。由于一次突变,红色感受器一分为二8,9;新类型的感受器把灵敏区域放在了更短波长的范围,成为我们所说的绿视锥细胞(不要与两栖动物和爬行动物等其他动物的蓝绿感受器混淆!我们稍后会回到这一点)。尽管红色和绿色感受器灵敏区域之间的差别并不算大,灵长类还是获得了区分红色和绿色色调的能力。而且它们还有了新的颜色:黄色和橙色。
顺便值得一提的还有视杆细胞——视网膜中的另一类感受器。它们非常灵敏,主要在黄昏、弱光下工作,那时视锥细胞已经接收不到足够的光子;而在白天的强光下,视杆细胞会“失明”(饱和),几乎不参与色觉。尽管如此,在低光强度下,在视锥和视杆细胞都工作的暮光范围内,它们可以帮助改善色觉,增加第四路信号10。视杆细胞对蓝绿色调最为灵敏(最大值约在500 nm)。
那么,人类通常有3种颜色感受器,称为S、M、L,或者蓝、绿、红视锥细胞。也有色觉存在偏差的人。有些人完全缺少一种视锥细胞,这会造成二色视觉:缺少L为红色盲,缺少M为绿色盲,缺少S为蓝色盲。更常见的情况是视锥细胞存在,但灵敏度发生了偏移。在最常见的绿色弱中,绿色M视锥细胞向红色一侧偏移,更接近L;在红色弱中则相反,红色L视锥细胞向绿色一侧偏移。在这两种情况下,M和L的曲线都会靠近,红绿分辨能力变差,而不是变好。
有些人可能拥有第四种视锥细胞,通常是L或M的偏移变体,从而具有真正的四色视觉——能够分辨光谱绿—黄—红部分中、对普通三色视者来说看起来完全相同的色调。
人类看不见紫外线——至少在不摘除晶状体的情况下是这样,因为晶状体是天然的UV滤光片。摘除了晶状体(无晶状体眼)或在白内障手术中换成不带UV滤光功能的人工晶状体的人开始能看到最低到370 nm的紫外区域11;不过这对视网膜并不太好,这种情况下医生强烈建议戴太阳镜。但也有没有这种UV滤光片的哺乳动物,它们用自己的蓝色感受器完全可以看到一部分紫外波段,例如小鼠12,13。
顺便说一下,晶状体的透过率与年龄关系很大。儿童(约10岁以下)的晶状体还非常透明:在315–320 nm附近的“窗口”,多达四分之三的光能通过,320–400 nm范围的大部分也能到达视网膜,他们能把近紫外线看成淡紫色的光。但晶状体会随着时间积累色素,这个窗口就会关闭:在年轻人(20–29岁)中,UV-A只有百分之几能通过,可见光谱的下限移到380–390 nm;到中年,近紫外线几乎被完全阻挡,到60–70岁,界限向可见光区域内移,到400–420 nm甚至更远14,15。
而且受损的不只是紫外线:随着年龄增长,晶状体变黄,对整个光谱短波端——紫色和蓝色色调——的透过变差。例如,从40–59岁组到60岁以上组,420 nm处的透过率下降约40%,而黄色的580 nm处只下降18%16。因此,在老年人看来,深紫色可能几乎像深灰色。如果再考虑到年龄导致的瞳孔缩小,那么到70–80岁,视网膜在蓝色波长(约460 nm)处接收到的光只有20岁时的几分之一17。
回到人类的色觉,它是这样的:
左上角是人类S、M、L感受器对纯光谱波的灵敏度曲线18–21。右上角是完整色域的动画:人类可能看到的所有颜色(嗯,至少是显示器能再现的范围)。下面是5条色带,展示了不同饱和度下人类的色域。
我要单独说明一下最后两张图,因为后面会用到其中出现的术语。对颜色编码,常常方便的是使用HSV模型——Hue(色相)、Saturation(饱和度)、Value(明度)。
色相在色环上编码,其中红、绿、蓝各有自己的极坐标——指向某种颜色或颜色混合的旋转角度。你可以在右上角的动画中看到这样的色环。
明度(亮度)编码为从0到100%的线性量,其中0是黑色,100是最亮。
饱和度与明度一样,编码为从0到100%,其中饱和度0表示没有任何明显的色调(灰度),100%是最鲜艳的颜色。
在这篇文章的后面,我会经常提到饱和度,有时也会提到亮度。
2. 鸡的光谱色彩空间 #
我们来看看鸡的视觉感受器灵敏度图。除了与人类相同的S、M、L之外,鸡还有第四种对紫外线敏感的感受器,称为V视锥细胞22–25,28。与人类视锥细胞灵敏度图一样,所有曲线都归一化到最灵敏感受器的灵敏度;在鸡身上,与人类不同,这个感受器是V。

让我们先定下来:怎样显示颜色的UV成分。品红(紫红色)在人类视觉中已经被“占用”:它是红色和蓝色的混合,但我们还需要一种方式来显示紫外线。从现在起,我们将用彩色噪点来显示紫外线。与其他颜色混合时,它会略微提高或降低所混合颜色的亮度和饱和度。噪点的密度表示对V视锥细胞作用的强度。
下图显示了基本颜色——红、黄、绿、青、蓝和品红——与紫外线的混合。对每种颜色,纵轴表示亮度,底部为0,顶部为100%;横轴表示紫外线的增加,从0到100%。
现在让我们把人类和鸡的感知曲线放在同一张图上比较:
在感知图上,人类的曲线在上方,鸡的曲线在下方,中间以色带的形式画出光谱的颜色。
从曲线可以看出,与其他视锥细胞的灵敏度相比,鸡的紫外线灵敏度要高得多,所以在不同水平的背景UV照明下,鸡看到的其余光谱颜色也会不同。
我们来试着对此建模:
但还需要指出另一个重要的细节:人类和鸡都是通过测量一种或几种感受器的视锥细胞的兴奋程度来区分相邻的纯光谱颜色。如果信号只落在一种视锥细胞的区域,比如人类的长波红色或短波蓝色,那么相邻的颜色就无法区分,只会改变它们的亮度。
只有当能够测量两种或更多不同类型感受器兴奋之间的差异时,才可能产生对中间颜色的感知。
例如,在大多数哺乳动物中,由于失去了蓝绿感受器和绿色感受器,光只落在S的灵敏区域、L的灵敏区域,或它们重叠的区域。结果是,狗只能看到蓝色、黄色,以及在S和L重叠区域里从蓝色到黄色的渐变。人类加上了M视锥细胞后,有可能进一步看到绿色和红色之间的差别,但分辨绿—红区域中相邻色调的能力,直接取决于该波长下M和L兴奋水平的差。
这意味着,当一种光谱颜色落在受体反应差异较小的区域里的一对不同类型视锥细胞上时,相邻色调与它的区分程度,会比落在信号差异较大的区域时更差。
鸡的S、M、L视锥细胞灵敏度最大值的分布与人类不同,信号捕捉的宽度也不同,这就意味着对纯光谱色调之间差异的感知强度也必然不同。
顺便说一句,这也为关于倒置光谱的一个老问题提供了一些启示;这个问题可以追溯到洛克,其现代表述则来自西德尼·舒梅克和内德·布洛克:“有没有可能,我对红色的体验在现象上与你对绿色的体验相同,而我们所有的行为和功能状态都完全一致?”对纯光谱颜色的感知与物理波长以及来自感受器的神经元的兴奋水平相关联。
如果我们把人类对全光谱的感知图景当作既定事实(毕竟所有显示器都是按尽可能匹配这一光谱来校准的),那么我们就可以按人类与鸡的感知水平之差来重新校准这条光谱带,得到下面这样的图:
在图中可以看到紫色区域有一条明显的暗带。原因是,光谱紫色在人看来是带红的蓝色,因为短波光不仅刺激S视锥细胞,也会微弱地刺激L视锥细胞;把红光和蓝光混合得到同样的S + L组合,则产生非光谱的品红。对鸡来说这并不适用,因为它有V型感受器,不过关于这一点下面还会详谈。
图的最下面一行显示了构成失真的两条曲线(横轴为色相R、Y、G、C、B、M):橙色曲线是色调的模糊程度(曲线越高,鸡越难区分与该颜色相邻的色调),浅蓝色曲线是相对于人类的颜色饱和度(越低,鸡在区分上就越不如人类)。由此可以看出,鸡的分辨力是不均匀的。在蓝色(约450 nm)、绿色(510–520 nm)和黄橙色(570–580 nm)区域,它区分相邻色调的能力明显好于人类:例如,两个相邻的黄色,鸡能区分的精度大约是人类的两倍。而在浅蓝色和青色(470–500 nm)、橙色和红色(600–640 nm)区域,它区分色调的能力比人类差得多。对于光谱的紫蓝端(430 nm以下),两者的分辨力都很弱。
让我们画一张图,展示人类和鸡的色觉对纯光谱色调的分辨能力:
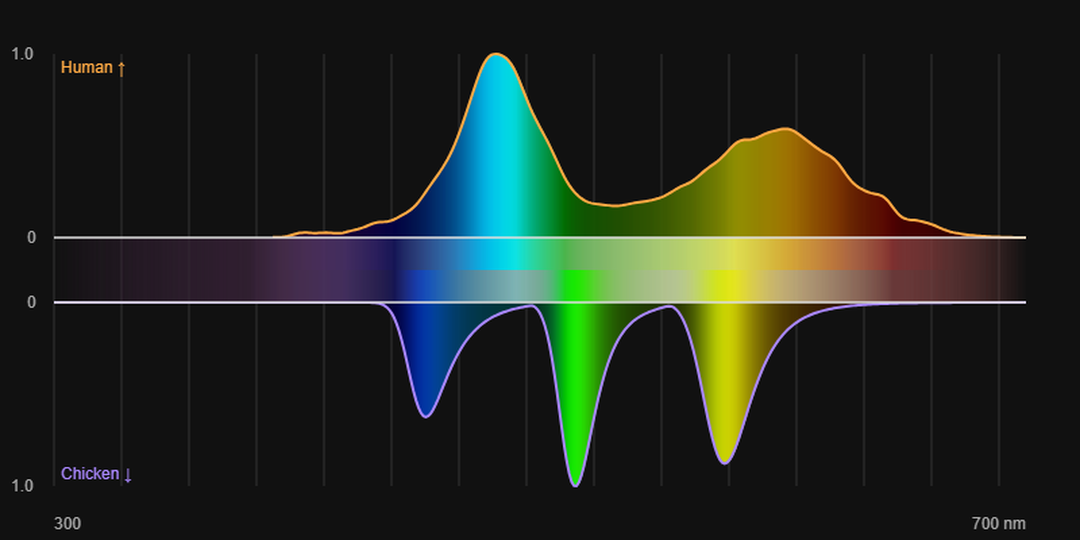
中间的色带显示了对相邻颜色区分强度的比较:人类越难区分色调,那些位置的光谱就显示得越暗淡(中间上方的色带),鸡也同样(中间下方的色带)。
3. 我们来试着为人类和鸡画出色环 #
人类的色环生成起来很简单:有三种原色,它们两两组合,构成人类所看到的颜色。
但人类有一种虚拟的颜色:红色和蓝色的混合,得到品红(紫红色)。光谱中没有这种颜色的波长,所以对这种颜色的感觉,是通过把蓝色和红色视锥细胞的兴奋信号相加,直接在大脑里产生的。此外,如果还有来自绿视锥细胞的信号,人类就会产生白色的感觉。
而鸡多了一种视锥细胞。这意味着什么?
- 第一,应该出现新的虚拟颜色:
- UV绿(M视锥细胞的灵敏度几乎不与V视锥细胞的灵敏度重叠);
- UV红(同样:L视锥细胞的灵敏度不与V视锥细胞的灵敏度重叠)。
- 第二,应该出现新的过渡色,就像我们在红色和绿色之间的黄色、在绿色和蓝色之间的青色(浅蓝)那样。
- 最后,只有当四种视锥细胞的信号相互平衡时,它才应该产生白色的感觉。如果接收到的信号中没有紫外线(例如在色温为“白色”的人工照明下),那么只由蓝、红、绿光谱颜色组成的混合,鸡应该会把它感知为某种新的、单独的颜色。
让我们试着用最直接的办法为色环建模:沿圆周依次放置红、绿、蓝、紫外线、绿 + UV、红 + UV,然后再放蓝色,这样在一个圆上就得到了所有可能的两两组合。为了更有表现力,我们会改变过渡色调的光强表现:在色调辨别力高于人类的地方,饱和度被加强,而在低于人类的地方,则相反,被减弱。而紫外线,和以前一样,用彩色噪点表示。
由于人类基本上看不到UV,右侧只剩下两种颜色混合产生的颜色成分。
4. 两种纯光谱颜色混合时(例如在反射光中)鸡身上会发生什么 #
但是,这种绘制色环的朴素方法有一个问题:大多数时候,我们和鸡感知到的都不是纯光谱线,而是同时包含多种频率的光的混合。而且,一种频率可以同时激发几种类型的视锥细胞,正如上面的光谱中看到的那样。所以光线的组合并不是简单地按V、S、M、L各通道求和,而是更复杂的东西。
这里需要稍微讲讲大脑是如何整合传感器信号的。每个感受器只报告一件事:它被激发得有多强。视锥细胞并不知道光的波长是多少,所以单个感受器的信号本身并不携带关于所见光谱颜色的准确信息。
颜色的感觉是在大脑中产生的,发生在来自不同视锥细胞的信号相互比较之时。感受器序列的信号被重组为三个拮抗通道30–32:红–绿(L对M)、黄–蓝(S对L与M之和)和亮度通道(L + M),之后这些通道再次混合,形成我们熟悉的色调感觉。非常简化地说:
A = 0.5·L + 0.5·M, RG = L − M, YB = S − 0.5·(L + M)
RG和YB的符号与比值决定色调33,34,A决定亮度,而当RG = YB = 0时得到白色或灰色。假设L = 100,M = 50,S = 10。那么A = 75,RG = +50(红色一侧),YB = 10 − 75 = −65(黄色一侧)。红色加黄色——这就是饱和的橙色。
图表中使用的是瞬时知觉模型:在亮度恒定、适应于中性白色的条件下对刺激的响应。在现实生活中,颜色信号会随时间累积,神经元甚至可能被某种颜色“过载”——适应这种颜色,把基准移向占主导的颜色(有色眼镜效应:如果长时间透过粉色眼镜看东西,过一段时间完整的色彩感觉会恢复,不过分辨相邻色调的能力当然会变差)。
继时对比和负后像(互补色后像)之类的错觉正是由此而来:盯着红色的东西看一会儿,再看一张白纸,就会看到一个带绿的青色斑点。
这对人类是怎么起作用的,现在就可以在显示器上体会到:屏幕上的画面是由R、G、B(以及较少见的W)子像素的光相加形成的。
但对鸡来说,要得到同样的颜色感觉,响应较弱的光谱颜色需要多取一些,响应较强的则要少取一些。所以相加的结果必须根据颜色灵敏度曲线重新计算。
为了画出这张图,我们将两两选取两种纯光谱颜色(即严格单一波长的光),按不同比例混合,并根据V/S/M/L视锥细胞的响应计算刺激。我们先得到人类的结果,然后再选出对应的鸡的结果。
UV和以前一样,用彩色噪点表示(密度由UV视锥细胞的响应决定)。如果在某个区域鸡对颜色的感知比人类更强,我们就让颜色更饱和;否则就更淡。
坐标轴:横轴和纵轴是纯色的波长λ1和λ2(300–650 nm,包括紫外线);每个格子里是它们在RGB通道上按50 : 50混合的结果。
对人类来说,这就是两种颜色的简单平均。人类看不见紫外线:在约400 nm左侧,蓝色通道只是逐渐减小(到约370 nm降为零),其他通道不变。
右边是混合时颜色平衡的偏移:对红色色调,混合中纵轴(λ2)的颜色占优;对蓝色色调,则是横轴(λ1)的颜色占优;亮度是偏移的大小。
5. 两种光谱颜色混合的色环 #
同样的图景也可以用另一种方式呈现——以色环的形式——并且顺便加入不同比例的第二种纯光谱颜色。在每个环中,角度表示第一种颜色的波长λ1(400–650 nm,从左边缘顺时针),半径表示第二种颜色的波长λ2(中心为400 nm,边缘为650 nm)。第一种颜色取权重100%,第二种颜色取第一种的p = 25、50、75和100%的权重。上方是人类(RGB加权平均),下方是鸡:颜色的饱和度按感知权重做了改变,UV用噪点显示(密度取决于UV视锥细胞对该混合的灵敏度)。
6. 两种光谱颜色混合时人类的色彩空间 #
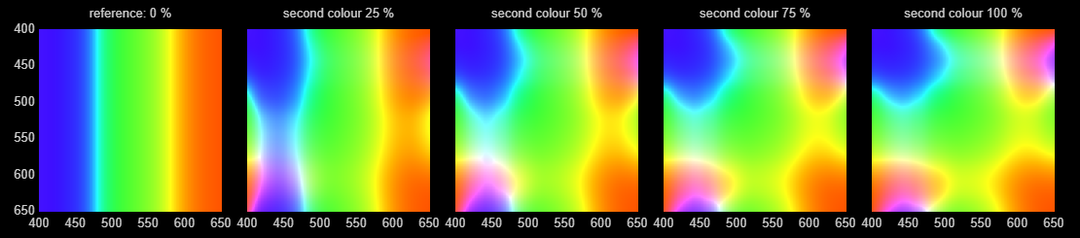
我们从示意图转向完整的色彩空间:去掉用于示意的饱和度增强和减弱,把颜色原样相加。先从人类开始。第一个方块是基准(第二种颜色混入0 %,即只剩纯的第一种颜色),其余方块中第二种颜色的比例为25、50、75和100%。横轴是λ1(第一种颜色,权重100%),纵轴是λ2(第二种颜色,权重为第一种的p),两个轴都是400–650 nm。刺激是两条光谱线之和(强度1和p),S/M/L视锥细胞对它的响应相加,颜色由总响应得到(亮度恒定)。
7. 两种光谱颜色混合时鸡的色彩空间 #
现在对鸡做同样的事。方块的构造方式与人类相同:一个第二种颜色为0 %的基准,以及25、50、75和100%的四个方块,两个轴都是400–650 nm。四种视锥细胞(V/S/M/L)的响应相加;S/M/L部分的颜色对应于其他图中鸡的颜色,没有额外的饱和度增强或减弱。UV用噪点显示,其密度由V视锥细胞的总响应决定。
8. 两种光谱颜色混合时人类与鸡的色彩空间比较 #
现在一切准备就绪,可以对鸡的完整色彩空间建模,并比较它与人类的有何不同。左边是人类,右边是鸡:横轴是λ1(第一种颜色),纵轴是λ2(第二种颜色),两个轴都是400–650 nm。在动画中,第二种光谱颜色的掺入比例从0平滑地增加到100%,然后同样平滑地减回去。刺激是人类S/M/L视锥细胞和鸡V/S/M/L视锥细胞的响应之和;由鸡的响应得到的颜色对应于其他图中鸡的颜色,UV用噪点显示,其密度由V视锥细胞的总响应决定。
关于颜色的讨论,我们暂时先停在这里。在下一篇文章中我们将进入第二部分:谈谈鸡的视角和双眼视觉(它的眼睛长在头的两侧,可以彼此独立地转动,既扩大了视野又失去了双眼视觉;而当两只眼睛都开始朝前看时,双眼视觉的区域就恢复了)、视力以及它从视野中心到周边是如何变化的、鸡在这些条件下如何对焦,还有大脑如何从这一切中重建出周围世界的连贯画面。然后我们把一切合在一起:这篇文章中的色觉、视角几何和视力——做成一个让人能够通过小鸡的眼睛看周围的模型。
所有图的交互式原版(在浏览器中用JavaScript绘制)及其说明,都收录在文章的精简版(英文)中。
参考文献 #
脊椎动物色觉的进化 #
- Bowmaker J.K. Evolution of colour vision in vertebrates // Eye. 1998. Vol. 12, Pt. 3b. P. 541–547. https://doi.org/10.1038/eye.1998.143 #
- Bowmaker J.K. Evolution of vertebrate visual pigments // Vision Research. 2008. Vol. 48, No. 20. P. 2022–2041. https://doi.org/10.1016/j.visres.2008.03.025 #
- Baden T., Osorio D. The retinal basis of vertebrate color vision // Annual Review of Vision Science. 2019. Vol. 5. P. 177–200. https://doi.org/10.1146/annurev-vision-091718-014926 #
- Shi Y., Yokoyama S. Molecular analysis of the evolutionary significance of ultraviolet vision in vertebrates // Proceedings of the National Academy of Sciences. 2003. Vol. 100, No. 14. P. 8308–8313. https://doi.org/10.1073/pnas.1532535100 #
夜行瓶颈与哺乳动物视蛋白的减少 #
- Gerkema M.P., Davies W.I.L., Foster R.G., Menaker M., Hut R.A. The nocturnal bottleneck and the evolution of activity patterns in mammals // Proceedings of the Royal Society B. 2013. Vol. 280, No. 1765. 20130508. https://doi.org/10.1098/rspb.2013.0508 #
- Borges R., Johnson W.E., O'Brien S.J. et al. Adaptive genomic evolution of opsins reveals that early mammals flourished in nocturnal environments // BMC Genomics. 2018. Vol. 19. P. 121. https://doi.org/10.1186/s12864-017-4417-8 #
- Davies W.I.L., Collin S.P., Hunt D.M. Molecular ecology and adaptation of visual photopigments in craniates // Molecular Ecology. 2012. Vol. 21, No. 13. P. 3121–3158. https://doi.org/10.1111/j.1365-294X.2012.05617.x #
灵长类三色视觉的进化 #
- Dulai K.S., von Dornum M., Mollon J.D., Hunt D.M. The evolution of trichromatic color vision by opsin gene duplication in New World and Old World primates // Genome Research. 1999. Vol. 9, No. 7. P. 629–638. https://doi.org/10.1101/gr.9.7.629 #
- Carvalho L.S., Pessoa D.M.A., Mountford J.K., Davies W.I.L., Hunt D.M. The genetic and evolutionary drives behind primate color vision // Frontiers in Ecology and Evolution. 2017. Vol. 5. P. 34. https://doi.org/10.3389/fevo.2017.00034 #
中间视觉 #
- Zele A.J., Cao D. Vision under mesopic and scotopic illumination // Frontiers in Psychology. 2015. Vol. 5. P. 1594. https://doi.org/10.3389/fpsyg.2014.01594 #
晶状体作为UV滤光片与紫外视觉 #
- Griswold M.S., Stark W.S. Scotopic spectral sensitivity of phakic and aphakic observers extending into the near ultraviolet // Vision Research. 1992. Vol. 32, No. 9. P. 1739–1743. https://doi.org/10.1016/0042-6989(92)90166-G #
- Hunt D.M., Carvalho L.S., Cowing J.A. et al. Spectral tuning of shortwave-sensitive visual pigments in vertebrates // Photochemistry and Photobiology. 2007. Vol. 83, No. 2. P. 303–310. https://doi.org/10.1562/2006-06-27-IR-952 #
- Tan Z., Sun W., Chen T.-W., Kim D., Ji N. Neuronal representation of ultraviolet visual stimuli in mouse primary visual cortex // Scientific Reports. 2015. Vol. 5. 12597. https://doi.org/10.1038/srep12597 #
晶状体透过率的年龄变化 #
- Weale R.A. Age and the transmittance of the human crystalline lens // The Journal of Physiology. 1988. Vol. 395. P. 577–587. https://doi.org/10.1113/jphysiol.1988.sp016935 #
- Kessel L., Lundeman J.H., Herbst K., Andersen T.V., Larsen M. Age-related changes in the transmission properties of the human lens and their relevance to circadian entrainment // Journal of Cataract & Refractive Surgery. 2010. Vol. 36, No. 2. P. 308–312. https://doi.org/10.1016/j.jcrs.2009.08.035 #
- Artigas J.M., Felipe A., Navea A., Fandiño A., Artigas C. Spectral transmission of the human crystalline lens in adult and elderly persons // Investigative Ophthalmology & Visual Science. 2012. Vol. 53, No. 7. P. 4076–4084. https://doi.org/10.1167/iovs.12-9471 #
老年性瞳孔缩小与视网膜照度 #
- Winn B., Whitaker D., Elliott D.B., Phillips N.J. Factors affecting light-adapted pupil size in normal human subjects // Investigative Ophthalmology & Visual Science. 1994. Vol. 35, No. 3. P. 1132–1137. PMID: 8125724. #
人类视锥细胞的光谱灵敏度 #
- Smith V.C., Pokorny J. Spectral sensitivity of the foveal cone photopigments between 400 and 500 nm // Vision Research. 1975. Vol. 15, No. 2. P. 161–171. https://doi.org/10.1016/0042-6989(75)90203-5 #
- Stiles W.S., Burch J.M. N.P.L. colour-matching investigation: final report (1958) // Optica Acta. 1959. Vol. 6, No. 1. P. 1–26. https://doi.org/10.1080/713826267 #
- Stockman A., MacLeod D.I.A., Johnson N.E. Spectral sensitivities of the human cones // Journal of the Optical Society of America A. 1993. Vol. 10, No. 12. P. 2491–2521. https://doi.org/10.1364/JOSAA.10.002491 #
- Stockman A., Sharpe L.T. The spectral sensitivities of the middle- and long-wavelength-sensitive cones derived from measurements in observers of known genotype // Vision Research. 2000. Vol. 40, No. 13. P. 1711–1737. https://doi.org/10.1016/S0042-6989(00)00021-3 #
光谱灵敏度与视色素 #
- Bowmaker J.K., Knowles A. The visual pigments and oil droplets of the chicken retina // Vision Research. 1977. Vol. 17, No. 7. P. 755–764. https://doi.org/10.1016/0042-6989(77)90117-1 #
- Govardovskii V.I., Zueva L.V. Visual pigments of chicken and pigeon // Vision Research. 1977. Vol. 17, No. 4. P. 537–543. https://doi.org/10.1016/0042-6989(77)90052-9 #
- Bowmaker J.K., Heath L.A., Wilkie S.E., Hunt D.M. Visual pigments and oil droplets from six classes of photoreceptor in the retinas of birds // Vision Research. 1997. Vol. 37, No. 16. P. 2183–2194. https://doi.org/10.1016/S0042-6989(97)00026-6 #
- Prescott N.B., Wathes C.M. Spectral sensitivity of the domestic fowl (Gallus g. domesticus) // British Poultry Science. 1999. Vol. 40, No. 3. P. 332–339. https://doi.org/10.1080/00071669987412 #
四色视觉与色觉 #
- Osorio D., Vorobyev M., Jones C.D. Colour vision of domestic chicks // Journal of Experimental Biology. 1999. Vol. 202, No. 21. P. 2951–2959. https://doi.org/10.1242/jeb.202.21.2951 #
- Olsson P., Lind O., Kelber A. Bird colour vision: behavioural thresholds reveal receptor noise // Journal of Experimental Biology. 2015. Vol. 218, No. 2. P. 184–193. https://doi.org/10.1242/jeb.111187 #
综述与建模 #
- Hart N.S. The visual ecology of avian photoreceptors // Progress in Retinal and Eye Research. 2001. Vol. 20, No. 5. P. 675–703. https://doi.org/10.1016/S1350-9462(01)00009-X #
- Wilby D., Toomey M.B., Olsson P., Frederiksen R., Cornwall M.C., Oulton R., Kelber A., Corbo J.C., Roberts N.W. Optics of cone photoreceptors in the chicken (Gallus gallus domesticus) // Journal of the Royal Society Interface. 2015. Vol. 12, No. 111. 20150591. https://doi.org/10.1098/rsif.2015.0591 #
视锥信号整合机制的综述 #
- Solomon S.G., Lennie P. The machinery of colour vision // Nature Reviews Neuroscience. 2007. Vol. 8, No. 4. P. 276–286. https://doi.org/10.1038/nrn2094 #
皮层中拮抗信号的转换与整合 #
- Li P., Garg A.K., Zhang L.A. et al. Cone opponent functional domains in primary visual cortex combine signals for color appearance mechanisms // Nature Communications. 2022. Vol. 13. 6344. https://doi.org/10.1038/s41467-022-34020-2 #
- De Valois R.L., Cottaris N.P., Elfar S.D., Mahon L.E., Wilson J.A. Some transformations of color information from lateral geniculate nucleus to striate cortex // Proceedings of the National Academy of Sciences. 2000. Vol. 97, No. 9. P. 4997–5002. https://doi.org/10.1073/pnas.97.9.4997 #
视锥信号归一化与相对组合的模型 #
- Rezeanu D., Neitz M., Neitz J. From cones to color vision: a neurobiological model that explains the unique hues // Journal of the Optical Society of America A. 2023. Vol. 40, No. 3. P. A1–A8. https://doi.org/10.1364/JOSAA.477227 #
- Neitz J., Neitz M. Neurobiological hypothesis of color appearance and hue perception // Journal of the Optical Society of America A. 2014. Vol. 31, No. 4. P. A195–A207. https://doi.org/10.1364/JOSAA.31.00A195 #
- Vorobyev M., Osorio D. Receptor noise as a determinant of colour thresholds // Proceedings of the Royal Society of London. Series B: Biological Sciences. 1998. Vol. 265, No. 1394. P. 351–358. https://doi.org/10.1098/rspb.1998.0302 #
作者:ymik · 2026年11月19日