Мир глазами цыплёнка. Часть первая, про цвет и восприятие.
1. О цветовом зрении человека и курицы #
В прошлой статье про моделирование кошачьего зрения я обещал показать окружающее глазами курицы. Начав работать, я понял, что текст стоит разделить на две части: первая — про тетрахроматизм и цветовое зрение, вторая — про углы обзора и бинокулярность, про остроту зрения, фокусировку и восстановление в мозге картины окружающего мира, и, собственно, про саму модель, позволяющую человеку попытаться понять, как это — видеть всё поверх клюва.
А по пути попробуем ответить на старый философский вопрос: «Возможно ли, что то, что я переживаю как красный, другой переживает как зелёный — так, что ни он сам, ни я, ни какой-либо внешний наблюдатель никогда не смогут это понять?» Начнём же с рассказа о том, как именно видит мир человек, а точнее — о теме этой статьи: об интересных особенностях цветового зрения.
Исторически большинство тетрапод, вылезших на сушу (к которым относятся амфибии, рептилии, птицы, млекопитающие), имеют тетрахроматическое зрение, то есть умеют различать не только синий, красный и зелёный цвета, но ещё и ультрафиолет как отдельный цвет1–4.
Но исторический предок людей потерял способность различать половину цветов из этого набора: большинство млекопитающих имеет только два цветовых зрительных рецептора2,7, лишившись возможности видеть сине-зелёный цвет, а также различать красный и зелёный цвет. Основная версия причины этой утраты заключается в том, что тот самый предок вёл ночной образ жизни и эти цвета ему были совершенно не нужны5,6.
В дальнейшем той части млекопитающих, что стала приматами, ведущими дневной образ жизни, зачем-то понадобилось различать красные и зелёные тона (по этому поводу есть несколько разных гипотез). В результате мутации красный рецептор раздвоился8,9, новый тип рецептора получил зону своей чувствительности в более коротковолновом диапазоне и стал тем, что мы называем зелёной колбочкой (не путать с сине-зелёным рецептором других животных, таких как амфибии и рептилии! Дальше к этому ещё вернёмся). И, несмотря на то, что разница между зонами чувствительности красного и зелёного рецептора не так велика, приматы обрели возможность разделять красные и зелёные оттенки. А ещё у них появились новые цвета: жёлтый и оранжевый.
Заодно стоит упомянуть палочки — ещё один вид рецепторов в сетчатке. Они очень чувствительны и работают в основном в сумерках, при слабом свете, когда колбочкам уже не хватает фотонов; а днём, при ярком освещении, палочки «слепнут» (насыщаются) и в цветовом зрении практически не участвуют. Тем не менее при низких интенсивностях света, в сумеречной области, где работают и колбочки, и палочки, они могут способствовать улучшению цветового зрения, добавляя четвёртый сигнал10. Чувствительность палочек наиболее высока к сине-зелёным тонам (максимум около 500 нм).
Итак, у человека обычно 3 вида цветовых рецепторов, называемых S, M, L, или синими, зелёными и красными колбочками. Есть и люди с девиациями цветового зрения. У некоторых полностью отсутствует один вид колбочек, что даёт дихромазию: протанопию без L, дейтеранопию без M, тританопию без S. Чаще колбочка есть, но её чувствительность сдвинута. При дейтераномалии, самом частом варианте, зелёная M-колбочка смещена в сторону красного, ближе к L; при протаномалии, наоборот, красная L смещена к зелёному. В обоих случаях кривые M и L сближаются, и различение красного и зелёного становится хуже, а не лучше.
У некоторых людей может быть четвёртый вид колбочек, обычно смещённый вариант L или M, дающий настоящую тетрахромазию — способность различать оттенки в части спектра зелёный–жёлтый–красный, неотличимые для обычного трихромата.
Человек зрительно не воспринимает ультрафиолет — по крайней мере, без удаления хрусталика, который является естественным UV-фильтром. Люди, у которых хрусталик удалён (афакия) или при операции по поводу катаракты заменён искусственным без УФ-фильтра, начинают видеть область УФ вплоть до 370 нм11; впрочем, это не очень полезно для сетчатки, и в этом случае врачи крайне рекомендуют носить солнцезащитные очки. Но есть и примеры млекопитающих, у которых нет подобного УФ-фильтра и которые своим синим рецептором вполне видят часть ультрафиолетового диапазона, например мыши12,13.
Кстати, пропускание хрусталика сильно зависит от возраста. У детей (примерно до 10 лет) он ещё очень прозрачен: в «окне» около 315–320 нм через него проходит до трёх четвертей света, значительная часть диапазона 320–400 нм тоже достигает сетчатки, и ближний ультрафиолет они способны видеть как бледно-фиолетовый свет. Но хрусталик со временем накапливает пигменты, и это окно закрывается: у молодых людей (20–29 лет) УФ-А проходит уже лишь считаные проценты, а нижняя граница видимого спектра смещается к 380–390 нм; к среднему возрасту ближний ультрафиолет блокируется практически полностью, а к 60–70 годам граница уезжает уже в видимую область, к 400–420 нм и дальше14,15.
Страдает при этом не только ультрафиолет: с возрастом хрусталик желтеет и хуже пропускает весь короткий конец спектра, фиолетовые и синие тона. Так, при переходе от группы 40–59 лет к группе 60+ пропускание на 420 нм падает примерно на 40%, а на жёлтых 580 нм — всего на 18%16. Поэтому глубокий фиолетовый у пожилых людей может казаться почти тёмно-серым. А если ещё и учитывать возрастное сужение зрачка, то к 70–80 годам сетчатка начинает получать на длине волны синего (около 460 нм) в разы меньше света, чем в 20 лет17.
Возвращаясь к цветовому зрению человека, вот как оно выглядит:
В верхнем левом углу графики чувствительности S, M, L рецепторов человека18–21 к чистой спектральной волне. В правом верхнем углу — анимация полного цветового охвата: всех цветов, которые только может увидеть человек (ну, по крайней мере, насколько это может передать дисплей). Внизу 5 линий, иллюстрирующих цветовой охват человека при разной насыщенности цвета.
Отдельно остановлюсь на последних двух диаграммах, потому что дальше будет использоваться представленная на них терминология. Для цветового кодирования зачастую удобно использовать модель HSV — Hue, Saturation, Value, или тон, насыщенность, яркость.
Тон кодируется по цветовому кругу, где красный, зелёный и синий имеют свою полярную координату — угол вращения, указывающий на цвет или смешение цветов. Такой цветовой круг вы видите на анимации в верхнем правом углу.
Яркость кодируется как линейная величина от 0 до 100%, где 0 — это чёрный, а 100 — самый светлый.
Насыщенность кодируется, как и яркость, от 0 до 100%, где 0 насыщенности — это отсутствие какого-либо выраженного оттенка (градации серого), а 100% — самый проявленный цвет.
В дальнейшем в этом тексте я часто буду упоминать насыщенность, она же сатурация, а иногда и яркость.
2. Спектральное цветовое пространство курицы #
Взглянем на диаграмму чувствительности зрительных рецепторов курицы. У курицы, кроме S, M, L, как у человека, есть ещё и четвёртый вид рецепторов, чувствительных к ультрафиолету, называемый V-колбочками22–25,28. Как и на графике чувствительности колбочек человека, все кривые нормированы к чувствительности самого чувствительного рецептора; у курицы, в отличие от человека, это V.
Небольшое пояснение. Хотя у курицы мы тоже называем рецепторы V, S, M, L, это лишь удобные обозначения по диапазону длин волн, а не указание на родство с одноимёнными рецепторами человека. Генетически V-колбочка курицы соответствует нашему синему S-рецептору, только сдвинутому в более коротковолновую область12. А вот синий S-рецептор и зелёный M-рецептор курицы — это как раз те самые сине-зелёный и зелёный рецепторы, которые потеряли млекопитающие2,7. И только красный L курицы родственен нашему красному, от которого позже отпочковался человеческий зелёный M. Об этом написано выше.
Так что набор рецепторов у курицы устроен совсем иначе, чем у человека, и картина цветового охвата получается совершенно другой. Дальше со всем этим будем подробно разбираться.

Сразу же определимся, как будем отображать UV-компоненту цвета. Фиолетовый цвет уже занят человеком: как смесь красного и синего, а показывать ультрафиолет надо. Здесь и далее для показа ультрафиолета будет применяться цветовой шум. При смешении с другими цветами он слегка поднимает или опускает как яркость, так и насыщенность цвета, с которым смешивается. Плотность шума указывает на интенсивность воздействия на V-колбочку.
Ниже на диаграмме показаны базовые цвета — красный, жёлтый, зелёный, циан (голубой), синий и маджента (фиолетовый) — в смеси с ультрафиолетом. По вертикальной оси каждого цвета откладывается яркость от 0 внизу до 100 % вверху, по горизонтальной — нарастание ультрафиолета от 0 до 100 %.
Теперь давайте сравним кривые перцепций человека и курицы на одной диаграмме:
На диаграмме перцепций кривые человека вверху, кривые курицы внизу, посередине полоской нарисованы цвета спектра.
Как видно из кривых, по сравнению с чувствительностью других колбочек восприятие ультрафиолета у курицы очень сильно задрано вверх, поэтому в условиях разного уровня фонового UV-освещения курица будет по-разному видеть остальные спектральные цвета.
Попробуем это смоделировать:
Но важно отметить ещё одну существенную деталь: соседние чистые спектральные цвета и человек, и курица отличают благодаря замеру уровня возбуждения колбочек одного или нескольких рецепторов. Если сигнал попадает в зону только одной колбочки, как с длинноволновым красным или коротковолновым синим у человека, то соседние цвета отличить невозможно, будет меняться только их яркость.
Возможность получить восприятие промежуточных цветов приходит только тогда, когда есть возможность замерить разницу между возбуждением рецепторов двух или более разных типов.
К примеру, у большинства млекопитающих, с утерей сине-зелёных и зелёных рецепторов, свет попадает только либо в зону чувствительности S, либо в зону L, либо в зону их пересечения. В результате собака видит только синий, жёлтый и градиент от синего к жёлтому в зоне пересечения S и L. У человека с добавлением M-колбочек появляется возможность ещё видеть разницу между зелёным и красным, но разрешающая способность, позволяющая различать соседние оттенки в зелёно-красной области, напрямую зависит от разницы уровня возбуждения M и L для этой длины волны.
Это означает, что когда спектральный цвет попадает на пару разных типов колбочек в зоне низкой разницы отклика рецепторов, то соседние с ним оттенки будут различаться с этим цветом хуже, чем когда они падают в зону, где разница сигналов больше.
Распределение максимумов чувствительности S-, M-, L-колбочек у курицы отличается от человеческого, как и ширина захвата сигнала, а значит, и сила восприятия разницы чистых спектральных цветовых оттенков обязана отличаться.
Это, кстати, проливает некоторый свет на старый вопрос об инвертированном спектре, восходящий ещё к Локку и сформулированный в современном виде Сидни Шумейкером и Недом Блоком: «Может ли быть, что моё переживание красного феноменально тождественно вашему переживанию зелёного, хотя все наши поведенческие и функциональные состояния идентичны?» Восприятие чистых спектральных цветов привязано к физической длине волны и уровню возбуждения нейронов от рецепторов.
Если мы возьмём за данность картинку восприятия полного спектра для человека (в конце концов, все мониторы калибруются так, чтобы максимально соответствовать этому спектру), то получаем возможность рекалибровки этой спектральной полосы по разнице между уровнями перцепции человека и курицы, чтобы получить такую диаграмму:
На диаграмме можно увидеть выраженную тёмную полосу в области фиолетового. Дело в том, что спектральный фиолетовый кажется человеку красновато-синим, потому что коротковолновый свет слабо возбуждает не только S-, но и L-колбочки; та же комбинация S + L при смешении красного и синего света даёт неспектральный пурпурный. Для курицы это неприменимо, поскольку у неё есть V-тип рецепторов, но подробнее об этом будет ниже.
В нижней строке диаграммы показаны две кривые, по которым построены искажения (по горизонтали оттенки R, Y, G, C, B, M): оранжевая — степень размытия оттенка (чем выше кривая, тем хуже курица различает соседние с этим цветом оттенки), голубая — насыщенность цвета относительно человека (чем ниже, тем сильнее курица уступает человеку в различении). Из них видно, что различение у курицы устроено неравномерно. Заметно лучше, чем у человека, она различает соседние оттенки в областях синего (около 450 нм), зелёного (510–520 нм) и жёлто-оранжевого (570–580 нм): например, два соседних жёлтых цвета курица различит примерно вдвое лучше человека. А вот в области голубого и циана (470–500 нм), оранжевого и красного (600–640 нм) она различает оттенки намного хуже человека. Для фиолетово-синего края спектра (до 430 нм) различение у обоих слабое.
Давайте нарисуем диаграмму, которая проиллюстрирует нам разрешающую способность цветового зрения человека и курицы по чистым спектральным оттенкам:
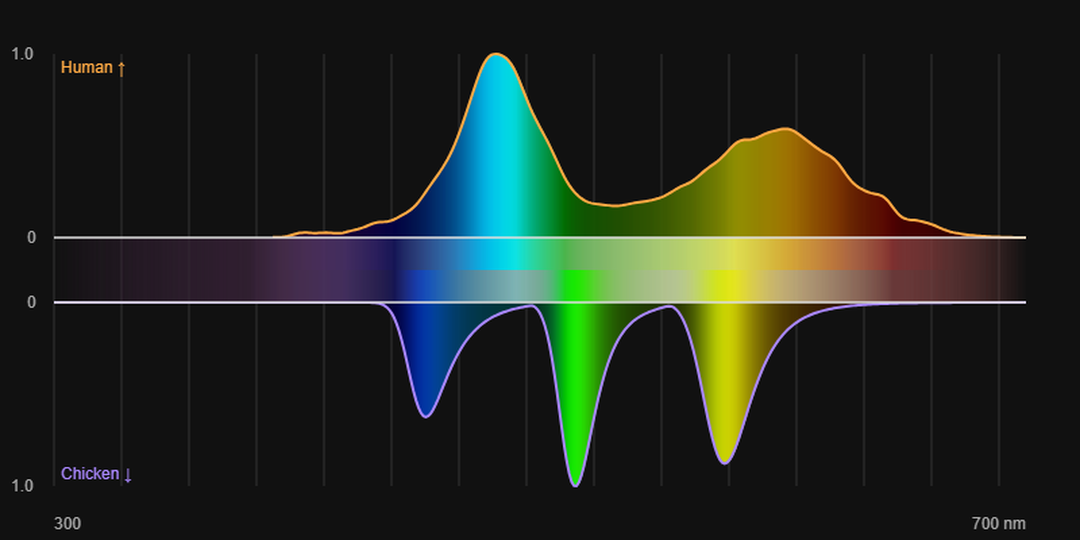
В центре на полосках показано сравнение интенсивности различения соседних цветов: чем слабее человек отличает оттенки, тем более блёклым показан спектр в этих местах (верхняя полоска в центре), аналогично для курицы (нижняя полоска в центре).
Модель Receptor Noise Limited (RNL), предложенная Михаилом Воробьёвым и Дэниелем Осорио35, является стандартным инструментом для предсказания цветовых порогов у животных, особенно тетрахроматов — птиц, рептилий и других26,27.
Основное допущение модели: порог различения двух цветов определяется исключительно шумом в фоторецепторах (shot noise + neural noise), а не последующими нейронными стадиями. Цветовое расстояние рассчитывается в пространстве, нормированном на шумы отдельных типов колбочек.
Модель не требует знания конкретных оппонентных каналов и поэтому особенно удобна для видов, у которых нейрофизиология оппонентности плохо изучена.
3. Попробуем нарисовать цветовые круги для человека и курицы #
Для человека цветовой круг генерируется просто: есть три основных цвета, и каждые два из них попарно составляют цвета, которые видит человек.
Но у человека есть один виртуальный цвет: смесь красного и синего, дающая пурпур (фиолетовый). В спектре для этого цвета длина волны отсутствует, так что ощущение этого цвета возникает прямо в мозге путём сложения сигналов возбуждения от синих и красных колбочек. При этом, если есть ещё сигнал от зелёной колбочки, человек получает ощущение белого цвета.
У курицы же есть дополнительная колбочка. Что это означает?
- Во-первых, должны появиться новые виртуальные цвета:
- UV-зелёный (чувствительность M-колбочек почти не пересекается с чувствительностью V-колбочек);
- UV-красный (аналогично: чувствительность L-колбочек не пересекается с чувствительностью V-колбочек).
- Во-вторых, должны появиться новые переходные цвета, такие же, как у нас жёлтый — между красным и зелёным, и циан (голубой) — между зелёным и синим.
- И наконец, ощущение белого цвета у неё должно возникать только тогда, когда сигналы всех четырёх колбочек уравновешены. Если же ультрафиолета в принимаемом сигнале нет (например, при искусственном освещении с температурой «белый»), то смесь только синего, красного и зелёного спектральных цветов курица должна воспринимать как некий новый, отдельный цвет.
Попробуем «в лоб» смоделировать цветовой круг, разместив последовательно по окружности красный, зелёный, синий, ультрафиолет, зелёный + UV, красный + UV, потом снова синий, чтобы на одном круге получить все возможные комбинации попарно. Для лучшей выразительности поменяем силу выраженности света для переходных тонов: там, где различимость оттенков выше, чем у человека, сатурация усилена, а где ниже — наоборот, уменьшена. А ультрафиолет, как и раньше, обозначим цветовым шумом.
Так как человек в основном не видит UV, в правой части остаётся только цветная компонента из смешения двух цветов.
4. Что происходит у курицы в случае смешивания двух чистых спектральных цветов (например, в отражённом свете) #
Но у такого наивного подхода к отрисовке цветового круга есть одна проблема: чаще всего мы, да и курица тоже, воспринимаем не чистые спектральные линии, а смеси сразу нескольких частот света. Причём одна частота может возбуждать сразу несколько типов колбочек, как было заметно на спектрах выше. Поэтому сочетание световых лучей — это не просто сумма по отдельным каналам V, S, M, L, а нечто более сложное.
Тут надо немного рассказать о том, как мозг объединяет сигналы сенсоров. Каждый рецептор сообщает только одно: насколько сильно он возбуждён. Какой длины волны был свет, колбочка не знает, так что сам по себе сигнал одного рецептора точной информации о видимом спектральном цвете не несёт.
Ощущение цвета появляется уже в мозге, когда сигналы от разных колбочек сравниваются между собой. Сигналы рецепторного ряда пересобираются в три оппонентных канала30–32: красно-зелёный (L против M), жёлто-синий (S против суммы L и M) и яркостный (L + M), после чего эти каналы смешиваются снова, создавая ощущение привычных нам оттенков. Если очень упрощённо:
A = 0,5·L + 0,5·M, RG = L − M, YB = S − 0,5·(L + M)
Знак и соотношение RG и YB задают оттенок33,34, A — яркость, а при RG = YB = 0 получается белый или серый. Допустим, L = 100, M = 50, S = 10. Тогда A = 75, RG = +50 (сторона красного), YB = 10 − 75 = −65 (сторона жёлтого). Красный плюс жёлтый — это насыщенный оранжевый.
На диаграммах использована модель мгновенной перцепции: отклик на стимул при постоянной яркости и адаптации к нейтральному белому. В реальной жизни цветовой сигнал накапливается со временем, и нейроны могут даже перегрузиться цветом — адаптироваться к нему, сместив норму в сторону доминирующего цвета (эффект цветных очков: если долго смотреть сквозь розовые очки, то спустя какое-то время возвратится ощущение полного цветовосприятия, хотя разрешающая способность определять соседние цветовые оттенки, конечно же, ухудшится).
Отсюда растут ноги у иллюзий вроде последовательного контраста и отрицательного последовательного образа: посмотрите подольше на красное, а потом на белый лист — и увидите зеленовато-голубое пятно.
Как это работает для человека, можно оценить прямо сейчас на дисплее: картинка на нём формируется из сложения света R, G, B (и, реже, W) пикселей.
А вот курице для того же ощущения цвета нужно взять больше спектрального цвета с меньшим откликом или меньше — если отклик больше. Так что итог сложения надо пересчитать в соответствии с кривыми цветочувствительности.
Для отрисовки диаграммы возьмём попарно два чистых спектральных цвета (т. е. свет строго одной длины волны), смешаем их в разных пропорциях и рассчитаем стимул по откликам V/S/M/L колбочек. Сначала получим результат для человека, затем подберём аналогичный для курицы.
UV, как и прежде, обозначим цветовым шумом (плотность — по отклику UV-колбочек). Если в данной области курица воспримет цвет сильнее человека, то цвет сделаем насыщеннее, иначе — более блёклым.
Оси: по горизонтали и вертикали длина волны чистого цвета λ1 и λ2 (300–650 нм, включая ультрафиолет), в клетке — результат их смешения 50 : 50 по каналам RGB.
Для человека это простое среднее двух цветов. Человек ультрафиолет не видит: левее ~400 нм у него просто уменьшается синий канал (до нуля к ~370 нм), остальные каналы не меняются.
Справа показан сдвиг цветового баланса при смешивании: оттенки красного — в смеси преобладает цвет по вертикали (λ2), синего — по горизонтали (λ1); яркость — величина сдвига.
5. Цветовые круги смешения двух спектральных цветов #
Ту же картину можно представить иначе — в виде цветовых кругов — и заодно добавить разную долю подмешиваемого чистого спектрального цвета. В каждом круге угол задаёт длину волны первого цвета λ1 (400–650 нм, по часовой стрелке от левого края), а радиус — длину волны второго цвета λ2 (400 нм в центре, 650 нм на ободе). Первый цвет берётся с весом 100 %, второй — с весом p = 25, 50, 75 и 100 % от первого. Вверху показан человек (взвешенное среднее RGB), внизу — курица: насыщенность цветов изменена в соответствии с весами перцепций, а UV показан шумом (плотность — по чувствительности UV-колбочки к смеси).
6. Цветовое пространство человека для смесей двух спектральных цветов #
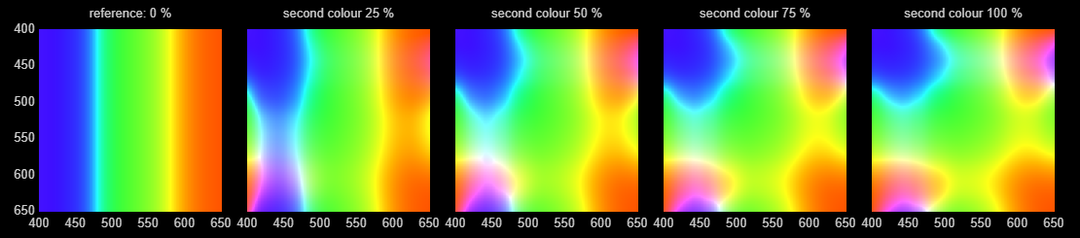
Переходим от иллюстраций к полному цветовому пространству: убираем иллюстративное усиление и ослабление насыщенности и складываем цвета как есть. Начнём с человека. Первый квадрат — эталон (второй цвет примешан на 0 %, т. е. остаётся чистый первый цвет), в остальных доля второго цвета составляет 25, 50, 75 и 100 %. По горизонтали λ1 (первый цвет, вес 100 %), по вертикали λ2 (второй цвет, вес p от первого), обе оси 400–650 нм. Стимул — сумма двух спектральных линий (мощность 1 и p), отклики S/M/L-колбочек на него складываются, а цвет получается по суммарному отклику (яркость постоянная).
7. Цветовое пространство курицы для смесей двух спектральных цветов #
Теперь то же самое для курицы. Квадраты построены так же, как для человека: эталон с 0 % второго цвета и четыре квадрата с 25, 50, 75 и 100 %, обе оси 400–650 нм. Складываются отклики четырёх колбочек (V/S/M/L), цвет по S/M/L-части сопоставлен цветам курицы из остальных диаграмм, без дополнительного усиления или ослабления насыщенности. UV показан шумом, плотность которого определяется суммарным откликом V-колбочки.
8. Сравнение цветовых пространств человека и курицы для смесей двух спектральных цветов #
А теперь всё готово, чтобы смоделировать полное цветовое пространство курицы и сравнить, чем оно отличается от человеческого. Слева показан человек, справа — курица: по горизонтали λ1 (первый цвет), по вертикали λ2 (второй цвет), обе оси 400–650 нм. В анимации примесь второго цвета спектра плавно растёт от 0 до 100 % и так же плавно убывает обратно. Стимул — сумма откликов S/M/L-колбочек у человека и V/S/M/L-колбочек у курицы; цвет по откликам курицы сопоставлен цветам курицы из остальных диаграмм, а UV показан шумом, плотность которого определяется суммарным откликом V-колбочки.
На этом разговор о цвете пока прервём. В следующей статье займёмся второй частью: поговорим об углах обзора курицы и её бинокулярности (глаза у неё расположены по бокам головы и могут двигаться независимо друг от друга, расширяя поле зрения и теряя бинокулярность, а когда оба начинают смотреть вперёд, область бинокулярного зрения возвращается), об остроте зрения и о том, как она меняется от центра поля зрения к периферии, о том, как в этих условиях курица фокусируется, а также о том, как мозг восстанавливает из всего этого цельную картину окружающего мира. А потом соберём всё вместе: и цветовое зрение из этой статьи, и геометрию обзора, и остроту, — в модель, которая позволяет человеку взглянуть на окружающее глазами цыплёнка.
Интерактивные оригиналы всех диаграмм (они рисуются в браузере на JavaScript) вместе с пояснениями собраны в сокращённой версии статьи.
Список литературы #
Эволюция цветового зрения позвоночных #
- Bowmaker J.K. Evolution of colour vision in vertebrates // Eye. 1998. Vol. 12, Pt. 3b. P. 541–547. https://doi.org/10.1038/eye.1998.143 #
- Bowmaker J.K. Evolution of vertebrate visual pigments // Vision Research. 2008. Vol. 48, No. 20. P. 2022–2041. https://doi.org/10.1016/j.visres.2008.03.025 #
- Baden T., Osorio D. The retinal basis of vertebrate color vision // Annual Review of Vision Science. 2019. Vol. 5. P. 177–200. https://doi.org/10.1146/annurev-vision-091718-014926 #
- Shi Y., Yokoyama S. Molecular analysis of the evolutionary significance of ultraviolet vision in vertebrates // Proceedings of the National Academy of Sciences. 2003. Vol. 100, No. 14. P. 8308–8313. https://doi.org/10.1073/pnas.1532535100 #
Ночное бутылочное горлышко и редукция опсинов у млекопитающих #
- Gerkema M.P., Davies W.I.L., Foster R.G., Menaker M., Hut R.A. The nocturnal bottleneck and the evolution of activity patterns in mammals // Proceedings of the Royal Society B. 2013. Vol. 280, No. 1765. 20130508. https://doi.org/10.1098/rspb.2013.0508 #
- Borges R., Johnson W.E., O'Brien S.J. et al. Adaptive genomic evolution of opsins reveals that early mammals flourished in nocturnal environments // BMC Genomics. 2018. Vol. 19. P. 121. https://doi.org/10.1186/s12864-017-4417-8 #
- Davies W.I.L., Collin S.P., Hunt D.M. Molecular ecology and adaptation of visual photopigments in craniates // Molecular Ecology. 2012. Vol. 21, No. 13. P. 3121–3158. https://doi.org/10.1111/j.1365-294X.2012.05617.x #
Эволюция трихроматии у приматов #
- Dulai K.S., von Dornum M., Mollon J.D., Hunt D.M. The evolution of trichromatic color vision by opsin gene duplication in New World and Old World primates // Genome Research. 1999. Vol. 9, No. 7. P. 629–638. https://doi.org/10.1101/gr.9.7.629 #
- Carvalho L.S., Pessoa D.M.A., Mountford J.K., Davies W.I.L., Hunt D.M. The genetic and evolutionary drives behind primate color vision // Frontiers in Ecology and Evolution. 2017. Vol. 5. P. 34. https://doi.org/10.3389/fevo.2017.00034 #
Мезопическое зрение #
- Zele A.J., Cao D. Vision under mesopic and scotopic illumination // Frontiers in Psychology. 2015. Vol. 5. P. 1594. https://doi.org/10.3389/fpsyg.2014.01594 #
Хрусталик как УФ-фильтр и УФ-зрение #
- Griswold M.S., Stark W.S. Scotopic spectral sensitivity of phakic and aphakic observers extending into the near ultraviolet // Vision Research. 1992. Vol. 32, No. 9. P. 1739–1743. https://doi.org/10.1016/0042-6989(92)90166-G #
- Hunt D.M., Carvalho L.S., Cowing J.A. et al. Spectral tuning of shortwave-sensitive visual pigments in vertebrates // Photochemistry and Photobiology. 2007. Vol. 83, No. 2. P. 303–310. https://doi.org/10.1562/2006-06-27-IR-952 #
- Tan Z., Sun W., Chen T.-W., Kim D., Ji N. Neuronal representation of ultraviolet visual stimuli in mouse primary visual cortex // Scientific Reports. 2015. Vol. 5. 12597. https://doi.org/10.1038/srep12597 #
Возрастные изменения пропускания хрусталика #
- Weale R.A. Age and the transmittance of the human crystalline lens // The Journal of Physiology. 1988. Vol. 395. P. 577–587. https://doi.org/10.1113/jphysiol.1988.sp016935 #
- Kessel L., Lundeman J.H., Herbst K., Andersen T.V., Larsen M. Age-related changes in the transmission properties of the human lens and their relevance to circadian entrainment // Journal of Cataract & Refractive Surgery. 2010. Vol. 36, No. 2. P. 308–312. https://doi.org/10.1016/j.jcrs.2009.08.035 #
- Artigas J.M., Felipe A., Navea A., Fandiño A., Artigas C. Spectral transmission of the human crystalline lens in adult and elderly persons // Investigative Ophthalmology & Visual Science. 2012. Vol. 53, No. 7. P. 4076–4084. https://doi.org/10.1167/iovs.12-9471 #
Сенильный миоз и освещённость сетчатки #
- Winn B., Whitaker D., Elliott D.B., Phillips N.J. Factors affecting light-adapted pupil size in normal human subjects // Investigative Ophthalmology & Visual Science. 1994. Vol. 35, No. 3. P. 1132–1137. PMID: 8125724. #
Спектральная чувствительность колбочек человека #
- Smith V.C., Pokorny J. Spectral sensitivity of the foveal cone photopigments between 400 and 500 nm // Vision Research. 1975. Vol. 15, No. 2. P. 161–171. https://doi.org/10.1016/0042-6989(75)90203-5 #
- Stiles W.S., Burch J.M. N.P.L. colour-matching investigation: final report (1958) // Optica Acta. 1959. Vol. 6, No. 1. P. 1–26. https://doi.org/10.1080/713826267 #
- Stockman A., MacLeod D.I.A., Johnson N.E. Spectral sensitivities of the human cones // Journal of the Optical Society of America A. 1993. Vol. 10, No. 12. P. 2491–2521. https://doi.org/10.1364/JOSAA.10.002491 #
- Stockman A., Sharpe L.T. The spectral sensitivities of the middle- and long-wavelength-sensitive cones derived from measurements in observers of known genotype // Vision Research. 2000. Vol. 40, No. 13. P. 1711–1737. https://doi.org/10.1016/S0042-6989(00)00021-3 #
Спектральная чувствительность и пигменты #
- Bowmaker J.K., Knowles A. The visual pigments and oil droplets of the chicken retina // Vision Research. 1977. Vol. 17, No. 7. P. 755–764. https://doi.org/10.1016/0042-6989(77)90117-1 #
- Govardovskii V.I., Zueva L.V. Visual pigments of chicken and pigeon // Vision Research. 1977. Vol. 17, No. 4. P. 537–543. https://doi.org/10.1016/0042-6989(77)90052-9 #
- Bowmaker J.K., Heath L.A., Wilkie S.E., Hunt D.M. Visual pigments and oil droplets from six classes of photoreceptor in the retinas of birds // Vision Research. 1997. Vol. 37, No. 16. P. 2183–2194. https://doi.org/10.1016/S0042-6989(97)00026-6 #
- Prescott N.B., Wathes C.M. Spectral sensitivity of the domestic fowl (Gallus g. domesticus) // British Poultry Science. 1999. Vol. 40, No. 3. P. 332–339. https://doi.org/10.1080/00071669987412 #
Тетрахромазия и цветовое зрение #
- Osorio D., Vorobyev M., Jones C.D. Colour vision of domestic chicks // Journal of Experimental Biology. 1999. Vol. 202, No. 21. P. 2951–2959. https://doi.org/10.1242/jeb.202.21.2951 #
- Olsson P., Lind O., Kelber A. Bird colour vision: behavioural thresholds reveal receptor noise // Journal of Experimental Biology. 2015. Vol. 218, No. 2. P. 184–193. https://doi.org/10.1242/jeb.111187 #
Обзоры и моделирование #
- Hart N.S. The visual ecology of avian photoreceptors // Progress in Retinal and Eye Research. 2001. Vol. 20, No. 5. P. 675–703. https://doi.org/10.1016/S1350-9462(01)00009-X #
- Wilby D., Toomey M.B., Olsson P., Frederiksen R., Cornwall M.C., Oulton R., Kelber A., Corbo J.C., Roberts N.W. Optics of cone photoreceptors in the chicken (Gallus gallus domesticus) // Journal of the Royal Society Interface. 2015. Vol. 12, No. 111. 20150591. https://doi.org/10.1098/rsif.2015.0591 #
Обзорные работы по механизмам объединения колбочковых сигналов #
- Solomon S.G., Lennie P. The machinery of colour vision // Nature Reviews Neuroscience. 2007. Vol. 8, No. 4. P. 276–286. https://doi.org/10.1038/nrn2094 #
Трансформация и интеграция оппонентных сигналов в коре #
- Li P., Garg A.K., Zhang L.A. et al. Cone opponent functional domains in primary visual cortex combine signals for color appearance mechanisms // Nature Communications. 2022. Vol. 13. 6344. https://doi.org/10.1038/s41467-022-34020-2 #
- De Valois R.L., Cottaris N.P., Elfar S.D., Mahon L.E., Wilson J.A. Some transformations of color information from lateral geniculate nucleus to striate cortex // Proceedings of the National Academy of Sciences. 2000. Vol. 97, No. 9. P. 4997–5002. https://doi.org/10.1073/pnas.97.9.4997 #
Модели нормализации и относительного комбинирования колбочковых сигналов #
- Rezeanu D., Neitz M., Neitz J. From cones to color vision: a neurobiological model that explains the unique hues // Journal of the Optical Society of America A. 2023. Vol. 40, No. 3. P. A1–A8. https://doi.org/10.1364/JOSAA.477227 #
- Neitz J., Neitz M. Neurobiological hypothesis of color appearance and hue perception // Journal of the Optical Society of America A. 2014. Vol. 31, No. 4. P. A195–A207. https://doi.org/10.1364/JOSAA.31.00A195 #
- Vorobyev M., Osorio D. Receptor noise as a determinant of colour thresholds // Proceedings of the Royal Society of London. Series B: Biological Sciences. 1998. Vol. 265, No. 1394. P. 351–358. https://doi.org/10.1098/rspb.1998.0302 #
Автор: ymik · 19 ноября 2026