ヒヨコの目で見る世界。第1部:色と知覚
1. 人間とニワトリの色覚について #
前回のネコの視覚をモデル化した記事で、ニワトリの目を通して周囲を見せると約束しました。作業を始めてみて、説明は二つの部分に分けるのがよいとわかりました。第一部は四色型色覚と色覚について、第二部は視野角と両眼視、視力、焦点合わせ、そして脳が周囲の世界の像を再構成するしくみについて、そして最後にモデルそのもの、つまり人間がくちばしの上から見るとはどういうことかを理解しようとするためのモデルについてです。
そしてその途中で、昔からある哲学的な問いにも答えてみたいと思います。「私が赤として経験しているものを、別の誰かが緑として経験している、ということはありえないだろうか。しかも、その本人にも、私にも、外部の観察者にも、それが決して知りえないような形で」。まずは人間が世界をどう見ているのか、もっと正確にはこの記事のテーマである色覚の興味深い特徴から始めましょう。
歴史的に見ると、陸に上がった四肢動物(両生類、爬虫類、鳥類、哺乳類)の大半は四色型色覚を持っています。つまり、青・赤・緑だけでなく、紫外線も独立した色として見分けられる1–4のです。
ところが人類の歴史上の祖先は、この組み合わせのうち半分の色を見分ける能力を失いました。大半の哺乳類は色を感じる視細胞を2種類しか持たず2,7、青緑を見る能力と、赤と緑を区別する能力を失っています。この喪失の理由についての有力な説は、まさにこの祖先が夜行性の生活を送っていて、これらの色がまったく必要なかったから5,6、というものです。
その後、哺乳類のうち昼行性の生活を送るようになって霊長類となった一群は、なぜか赤と緑の色調を見分ける必要に迫られました(これについてはいくつかの異なる仮説があります)。突然変異の結果、赤の受容体が二つに分かれ8,9、新しいタイプの受容体は感度の範囲をより短波長側に持ち、私たちが緑錐体と呼ぶものになりました(両生類や爬虫類など他の動物が持つ青緑の受容体と混同しないでください!これについては後でまた触れます)。赤と緑の受容体の感度域の差はそれほど大きくないにもかかわらず、霊長類は赤と緑の色合いを分けられるようになりました。さらに、黄色とオレンジという新しい色も現れました。
ついでに桿体にも触れておきましょう。網膜にあるもう一つの種類の受容体です。桿体は非常に感度が高く、主に薄暮や弱い光の下、錐体では光子が足りなくなる条件で働きます。昼間の明るい光の下では桿体は「目がくらみ」(飽和し)、色覚にはほとんど関与しません。とはいえ、光の強さが低いとき、錐体と桿体の両方が働く薄明の領域では、桿体が色覚の向上に寄与することがあり、第4の信号を加えます10。桿体の感度は青緑の色調でもっとも高くなります(最大は約500 nm)。
さて、人間はふつう3種類の色受容体を持ち、それはS、M、L、あるいは青・緑・赤の錐体と呼ばれます。色覚に偏りのある人もいます。ある種類の錐体がまったくない人では2色覚が生じます。Lがなければ1型2色覚、Mがなければ2型2色覚、Sがなければ3型2色覚です。より多いのは、錐体はあるものの感度がずれている場合です。もっとも多い2型3色覚では緑のM錐体が赤の側、つまりLの近くへずれ、1型3色覚では逆に赤のL錐体が緑の側へずれています。どちらの場合もMとLの曲線が近づき、赤と緑の識別は良くなるのではなく悪くなります。
一部の人には第4の種類の錐体があることがあります。多くはLまたはMのずれた変異型で、これが真の4色型色覚をもたらします。つまり、通常の3色型色覚の人には同じに見える、スペクトルの緑〜黄〜赤の部分の色合いを見分ける能力です。
人間は紫外線を見ることができません。少なくとも、天然のUVフィルターである水晶体を取り除かない限りは。水晶体を摘出した人(無水晶体眼)や、白内障手術でUVフィルターのない人工水晶体に置き換えた人は、370 nmまでの紫外域が見えるようになります11。ただしこれは網膜にはあまりよくなく、この場合、医師はサングラスの着用を強く勧めます。一方で、そのようなUVフィルターを持たず、青の受容体で紫外域の一部をじゅうぶん見られる哺乳類もいます。たとえばマウスです12,13。
ところで、水晶体の透過率は年齢によって大きく変わります。子ども(およそ10歳まで)の水晶体はまだとても透明で、315〜320 nm付近の「窓」では光の最大四分の三が通り抜け、320〜400 nmの範囲の大部分も網膜に届き、近紫外線を淡い紫色の光として見ることができます。しかし水晶体は時間とともに色素を蓄積し、この窓は閉じていきます。若い人(20〜29歳)ではUV-Aがわずか数パーセントしか通らず、可視スペクトルの下限は380〜390 nmへ移ります。中年になるころには近紫外線はほぼ完全に遮断され、60〜70歳までに限界は可視域の中へ食い込み、400〜420 nm、あるいはそれ以上になります14,15。
しかも、損なわれるのは紫外線だけではありません。加齢とともに水晶体は黄変し、スペクトルの短波長側全体、つまり紫や青の色調を通しにくくなります。たとえば40〜59歳のグループから60歳以上のグループに移ると、420 nmでの透過率は約40%低下し、黄色の580 nmではわずか18%しか低下しません16。そのため、高齢の人には深い紫がほとんど暗い灰色に見えることがあります。さらに加齢による瞳孔の縮小も考慮に入れると、70〜80歳では、20歳のときと比べて、青の波長(約460 nm)で網膜に届く光が数分の一になります17。
人間の色覚に話を戻すと、それは次のようなものです。
左上は、純粋なスペクトル波長に対する人間のS、M、L受容体の感度グラフです18–21。右上は、全色域のアニメーションです。人間が見られるすべての色を示しています(まあ、少なくともディスプレイが再現できる範囲では)。下の5本の帯は、彩度を変えたときの人間の色域を示しています。
最後の二つの図については別に説明しておきます。そこで示す用語が以降で使われるからです。色のコード化には、HSVモデル、つまりHue(色相)、Saturation(彩度)、Value(明度)がしばしば便利です。
色相は色相環上でコード化されます。そこでは赤・緑・青がそれぞれ固有の極座標、すなわち色または色の混合を指す回転角を持っています。そのような色相環は、右上のアニメーションで見ることができます。
明度(明るさ)は0〜100%の線形の量としてコード化され、0は黒、100は最も明るい状態です。
彩度は明度と同じく0〜100%でコード化され、彩度0は目立った色合いがまったくない状態(灰色の階調)、100%はもっとも鮮やかな色です。
この文章の以降の部分では、彩度の話がよく出てきます。ときには明るさの話も出てきます。
2. ニワトリのスペクトル色空間 #
ニワトリの視覚受容体の感度の図を見てみましょう。ニワトリには、人間と同じS、M、Lのほかに、紫外線に感度を持つ第4の種類の受容体があり、V錐体と呼ばれます22–25,28。人間の錐体の感度グラフと同様に、すべての曲線は最も感度の高い受容体の感度で規格化されています。ニワトリでは、人間とは違って、それがVです。
ちょっとした補足です。ニワトリの受容体も同じくV、S、M、Lと呼びますが、これは波長域による便宜上の呼び名にすぎず、同名の人間の受容体と近縁であることを意味するものではありません。遺伝的には、ニワトリのV錐体は私たちの青のS受容体に相当し、ただより短波長の領域へずれているだけです12。一方、ニワトリの青のS受容体と緑のM受容体は、まさに哺乳類が失った青緑と緑の受容体にあたります2,7。そしてニワトリの赤のL受容体だけが私たちの赤の受容体と近縁で、そこから後に人間の緑のM受容体が分かれました。これについては上で述べたとおりです。
つまり、ニワトリの受容体の構成は人間のそれとはまったく違っており、色域の姿もまったく別のものになります。これからこのすべてを詳しく見ていきます。

最初に、色のUV成分をどう表示するかを決めておきましょう。赤紫(マゼンタ)は人間の色覚では赤と青の混合色としてすでに「使われて」いますが、紫外線もなんとか表示しなければなりません。以降、紫外線の表示にはカラーノイズを使います。他の色と混ざるとき、ノイズは混ざる相手の色の明るさと彩度をどちらもわずかに上げたり下げたりします。ノイズの密度は、V錐体への刺激の強さを示します。
下の図は、基本色(赤、黄、緑、シアン、青、マゼンタ)を紫外線と混ぜたものです。各色について、縦軸は明るさで、下が0、上が100%です。横軸は紫外線の増加で、0から100%です。
では、人間とニワトリの知覚曲線を一つの図で比べてみましょう。
知覚の図では、上に人間の曲線、下にニワトリの曲線があり、その間にスペクトルの色が帯として描かれています。
曲線からわかるように、他の錐体の感度に比べて、ニワトリの紫外線感度はずっと高くなっています。そのため、背景のUV照明のレベルが違えば、ニワトリはそれ以外のスペクトル色も違って見ることになります。
これをモデル化してみましょう。
ここでもう一つ重要な点に触れておく必要があります。人間もニワトリも、隣り合う純粋なスペクトル色を見分けるのは、1種類または複数の種類の錐体の興奮レベルを比べることによってです。信号が一つの錐体の領域にしか入らない場合、たとえば人間にとっての長波長の赤や短波長の青のような場合は、隣り合う色を区別することはできず、変わるのは明るさだけです。
中間の色を知覚できるようになるのは、二つ以上の異なる種類の受容体の興奮の差を測ることができるときだけです。
たとえば大半の哺乳類では、青緑と緑の受容体を失ったことで、光はSの感度域か、Lの感度域か、あるいは両者が重なる領域のいずれかにしか入りません。その結果、イヌが見るのは青と黄色と、SとLが重なる領域での青から黄色へのグラデーションだけです。人間ではM錐体が加わったことで、緑と赤の違いも見えるようになりますが、緑〜赤の領域で隣り合う色合いを見分ける分解能は、その波長でのMとLの興奮レベルの差に直接左右されます。
つまり、スペクトル色が、受容体の応答の差が小さい領域で二つの異なる種類の錐体に入るとき、隣り合う色合いとその色との区別は、信号の差が大きい領域に入る場合より悪くなるということです。
ニワトリのS、M、L錐体の感度の最大値の分布は人間のものとは異なり、信号を捉える幅も異なります。ということは、純粋なスペクトルの色合いの違いを知覚する強さも、違ってこざるをえません。
ちなみにこれは、ロックにまでさかのぼり、シドニー・シューメイカーとネッド・ブロックによって現代的なかたちで定式化された、逆転スペクトルという古い問いに、いくらか光を当ててくれます。「私の赤の経験が、あなたの緑の経験と現象的に同一である、ということはありうるだろうか。私たちの行動的・機能的な状態はすべて同一であるのに」。純粋なスペクトル色の知覚は、物理的な波長と、受容体からのニューロンの興奮レベルに結びついています。
人間の全スペクトルの知覚像を前提として受け入れるなら(結局のところ、すべてのモニターはこのスペクトルにできるだけ合うよう校正されています)、このスペクトルの帯を人間とニワトリの知覚レベルの差に従って再校正し、次のような図を得ることができます。
図には、紫の領域にはっきりした暗い帯が見えます。スペクトルの紫は、短い波長がS錐体だけでなくL錐体もわずかに刺激するため、人間には赤みがかった青に見えるからです。赤と青の光を混ぜて同じS + Lの組み合わせをつくると、スペクトルにない赤紫になります。ニワトリにはこれは当てはまりません。V型の受容体を持っているからですが、これについては後でもう少し詳しく述べます。
図の下の行には、歪みの元になった二本の曲線が示されています(横軸は色相R、Y、G、C、B、M)。オレンジの曲線は色合いのぼやけの度合いです(曲線が高いほど、ニワトリはその色に隣り合う色合いを見分けにくくなります)。水色の曲線は人間に対する色の彩度です(低いほど、ニワトリは識別の点で人間に劣ります)。これらから、ニワトリの識別力が一様でないことがわかります。青(約450 nm)、緑(510〜520 nm)、黄橙(570〜580 nm)の領域では、ニワトリは隣り合う色合いを人間よりも明らかによく見分けます。たとえば、隣り合う二つの黄色を、ニワトリは人間のおよそ倍の精度で見分けるでしょう。ところが水色とシアン(470〜500 nm)、オレンジと赤(600〜640 nm)の領域では、人間よりずっと悪くしか見分けられません。スペクトルの紫青の端(430 nm以下)では、どちらも識別力が弱くなります。
人間とニワトリの色覚が、純粋なスペクトルの色合いをどれだけ分解して見分けられるかを示す図を描いてみましょう。
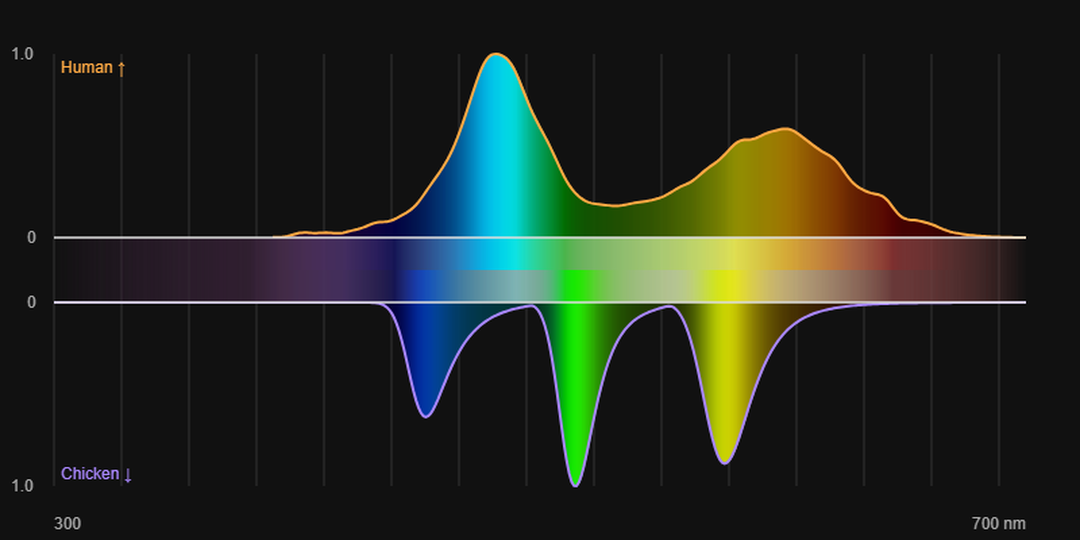
中央の帯には、隣り合う色の識別の強さの比較が示されています。人間が色合いを見分けにくいほど、その箇所のスペクトルは色あせて表示されます(中央の上の帯)。ニワトリについても同様です(中央の下の帯)。
受容体ノイズ制限(Receptor Noise Limited、RNL)モデルは、ミーシャ・ヴォロビエフとダニエル・オソリオ35が提案したもので、動物、特に四色型色覚をもつ動物——鳥類、爬虫類など26,27——の色の閾値を予測するための標準的な道具です。
このモデルの基本的な仮定は、二つの色を識別する閾値はもっぱら視細胞のノイズ(ショットノイズ + 神経ノイズ)によって決まり、その後の神経段階には左右されない、というものです。色距離は、錐体の種類ごとのノイズで規格化された空間で計算されます。
このモデルは具体的な反対色チャンネルについての知識を必要としないため、反対色性の神経生理学がよくわかっていない種に特に便利です。
3. 人間とニワトリの色相環を描いてみる #
人間の色相環は簡単に作れます。三つの原色があり、そのうち二つずつの組が、人間に見える色を構成します。
ただし人間には一つ、仮想の色があります。赤と青の混合で、赤紫(マゼンタ)になる色です。スペクトル上にはこの色の波長は存在しないので、この色の感覚は、青と赤の錐体からの興奮信号を足し合わせることで、まさに脳の中で生じます。さらに緑の錐体からの信号もあれば、人間は白の感覚を得ます。
一方、ニワトリには追加の錐体があります。これは何を意味するのでしょうか。
- 第一に、新しい仮想の色が現れるはずです。
- UVグリーン(M錐体の感度は、V錐体の感度とほとんど重なりません)。
- UVレッド(同様に、L錐体の感度はV錐体の感度と重なりません)。
- 第二に、新しい遷移色が現れるはずです。赤と緑の間にある私たちの黄色や、緑と青の間にあるシアンのようなものです。
- そして最後に、白の感覚は、四つの錐体すべての信号がつり合っているときにだけ生じるはずです。受け取る信号に紫外線がない場合(たとえば色温度が「白」の人工照明の下)、青・赤・緑のスペクトル色だけの混合を、ニワトリは何か新しい、独立した色として知覚するはずです。
色相環を単純なやり方でモデル化してみましょう。円周上に、赤、緑、青、紫外線、緑+UV、赤+UV、そしてふたたび青の順に配置し、一つの円で可能なすべての組み合わせをペアごとに得られるようにします。わかりやすくするために、遷移色については光の強さの表現を変えます。色合いの識別性が人間より高い場所では彩度を強め、低い場所では逆に弱めます。そして紫外線は、これまでどおりカラーノイズで示します。
人間はたいてい紫外線を見ないので、右側には二つの色の混合による色の成分だけが残ります。
4. 二つの純粋なスペクトル色が混ざったとき(たとえば反射光で)ニワトリに何が起きるか #
しかし、色相環をこのように素朴に描く方法には一つ問題があります。私たちも、そしてニワトリも、たいていは純粋なスペクトル線ではなく、複数の周波数の光が一度に混ざったものを知覚しているのです。しかも一つの周波数が一度に複数の種類の錐体を興奮させることがあります。上のスペクトルを見ればわかるとおりです。ですから、光線の組み合わせは、チャンネルV、S、M、Lごとの単純な和ではなく、もっと複雑なものになります。
ここで、脳がセンサーの信号をどう統合するのかについて、少し説明しておく必要があります。それぞれの受容体が伝えるのはただ一つのこと、つまり自分がどれだけ強く興奮しているかだけです。光の波長がどれだったかを錐体は知らないので、一つの受容体の信号だけでは、見えているスペクトル色についての正確な情報は得られません。
色の感覚は、異なる錐体からの信号どうしが比べられるときに、脳の中で生まれます。受容体列の信号は三つの反対色チャンネル30–32、すなわち赤–緑(L対M)、黄–青(S対LとMの和)、明るさ(L + M)に組み替えられ、その後これらのチャンネルが再び混ぜ合わされて、私たちになじみのある色合いの感覚がつくられます。ごく単純化すると次のとおりです。
A = 0.5·L + 0.5·M, RG = L − M, YB = S − 0.5·(L + M)
RGとYBの符号と比が色合いを決め33,34、Aが明るさを決めます。RG = YB = 0のときは白または灰色になります。たとえば、L = 100、M = 50、S = 10とします。するとA = 75、RG = +50(赤の側)、YB = 10 − 75 = −65(黄の側)です。赤と黄を合わせると、鮮やかなオレンジになります。
図では瞬間的な知覚のモデルを使っています。つまり、明るさが一定で、中立的な白に順応した状態での刺激への応答です。実際には色の信号は時間とともに蓄積され、ニューロンは色で過負荷になることさえあります。つまりその色に順応し、基準を優勢な色の側へずらすのです(色付き眼鏡の効果:ピンクの眼鏡越しに長く見ていると、しばらくして完全な色の感覚が戻ってきます。ただし、隣り合う色合いを見分ける分解能は、もちろん低下します)。
継時対比や陰性残像(補色残像)のような錯視は、ここから来ています。赤いものをしばらく見つめてから白い紙を見ると、緑がかった青色の斑点が見えるはずです。
これが人間にとってどう働くかは、いまディスプレイで確かめられます。画面の像は、R、G、B(まれにW)のサブピクセルの光を足し合わせてつくられているのです。
ところがニワトリが同じ色の感覚を得るには、応答が弱いスペクトル色をより多く、あるいは応答が強い場合はより少なくとる必要があります。そのため、足し合わせの結果を、色感度曲線に従って計算し直さなければなりません。
図を描くために、二つの純粋なスペクトル色(つまりただ一つの波長の光)をペアにして取り、さまざまな割合で混ぜ、V/S/M/L錐体の応答から刺激を計算します。まず人間の結果を求め、次にそれに対応するニワトリの結果を選びます。
UVは、これまでどおりカラーノイズで示します(密度はUV錐体の応答で決まります)。その領域でニワトリが人間より色を強く知覚する場合は色をより鮮やかにし、そうでなければより淡くします。
軸:横軸と縦軸は純色の波長λ1とλ2(300〜650 nm、紫外線を含む)で、各マスにはそれらをRGBチャンネルで50 : 50に混ぜた結果が示されています。
人間の場合、これは二つの色の単純な平均です。人間は紫外線を見ません。約400 nmより左では青のチャンネルが単純に減り(約370 nmでゼロになる)、他のチャンネルは変わりません。
右側は混合による色バランスのずれです。赤の色合いでは混合の中で縦軸(λ2)の色が優勢で、青の色合いでは横軸(λ1)の色が優勢です。明るさはずれの大きさです。
5. 二つのスペクトル色を混ぜた色相環 #
同じ図は別の形、つまり色相環の形でも表せますし、そのうえ混ぜる純粋なスペクトル色の割合を変えることもできます。各環では、角度が第一の色の波長λ1(400〜650 nm、左端から時計回り)を、半径が第二の色の波長λ2(中心が400 nm、縁が650 nm)を表します。第一の色は重み100%、第二の色は第一の色の p = 25、50、75、100%の重みで取ります。上には人間(RGBの加重平均)、下にはニワトリを示します。色の彩度は知覚の重みに応じて変えてあり、UVはノイズで示します(密度は、混合に対するUV錐体の感度に従います)。
6. 二つのスペクトル色の混合に対する人間の色空間 #
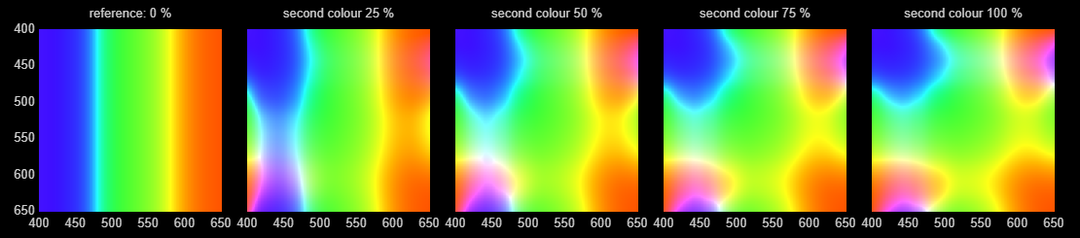
図解から完全な色空間へ移ります。彩度の説明的な強調と弱めを取りやめ、色をそのまま足し合わせます。人間から始めましょう。最初の正方形は基準です(第二の色が0 %混ざっている、つまり純粋な第一の色が残る)。ほかの正方形では、第二の色の割合が25、50、75、100%です。横軸はλ1(第一の色、重み100%)、縦軸はλ2(第二の色、第一の色に対する重みp)で、どちらの軸も400〜650 nmです。刺激は二つのスペクトル線(強度1とp)の和で、それに対するS/M/L錐体の応答が足し合わされ、色は合計の応答から得られます(明るさは一定)。
7. 二つのスペクトル色の混合に対するニワトリの色空間 #
今度はニワトリについて同じことをします。正方形は人間の場合と同じ方法で作られています。第二の色が0 %の基準と、25、50、75、100%の四つの正方形で、どちらの軸も400〜650 nmです。四つの錐体(V/S/M/L)の応答が足し合わされ、S/M/L部分の色は、他の図にあるニワトリの色に対応づけられ、彩度の追加の強調や弱めは行いません。UVは、密度がV錐体の合計の応答で決まるノイズで示します。
8. 二つのスペクトル色の混合に対する人間とニワトリの色空間の比較 #
これで、ニワトリの完全な色空間をモデル化し、それが人間のものとどう違うかを比べる準備が整いました。左が人間、右がニワトリです。横軸はλ1(第一の色)、縦軸はλ2(第二の色)で、どちらの軸も400〜650 nmです。アニメーションでは、第二のスペクトル色の混入が0から100%まで滑らかに増え、同じように滑らかに元へ減っていきます。刺激は、人間ではS/M/L錐体、ニワトリではV/S/M/L錐体の応答の和です。ニワトリの応答にもとづく色は他の図にあるニワトリの色に対応づけられ、UVは、密度がV錐体の合計の応答で決まるノイズで示されます。
色についての話は、ここでいったん中断します。次の記事では第二の部分に取りかかります。ニワトリの視野角と両眼視(目は頭の両側にあり、互いに独立して動くことができるので、視野が広がって両眼視を失ったり、両目が前を向くと両眼視の領域が戻ったりします)、視力と、それが視野の中心から周辺にかけてどう変化するか、こうした条件のもとでニワトリがどのように焦点を合わせるのか、そして脳がこれらすべてから周囲の世界のまとまった像をどう再構成するのかについて話します。それから、すべてを一つにまとめます。この記事の色覚、視野の幾何、視力を、人間がヒヨコの目で周囲を見られるようにするモデルへと。
すべての図のインタラクティブな原本(ブラウザ上でJavaScriptで描画されます)は、解説とあわせて記事の短縮版(英語)にまとめてあります。
参考文献 #
脊椎動物の色覚の進化 #
- Bowmaker J.K. Evolution of colour vision in vertebrates // Eye. 1998. Vol. 12, Pt. 3b. P. 541–547. https://doi.org/10.1038/eye.1998.143 #
- Bowmaker J.K. Evolution of vertebrate visual pigments // Vision Research. 2008. Vol. 48, No. 20. P. 2022–2041. https://doi.org/10.1016/j.visres.2008.03.025 #
- Baden T., Osorio D. The retinal basis of vertebrate color vision // Annual Review of Vision Science. 2019. Vol. 5. P. 177–200. https://doi.org/10.1146/annurev-vision-091718-014926 #
- Shi Y., Yokoyama S. Molecular analysis of the evolutionary significance of ultraviolet vision in vertebrates // Proceedings of the National Academy of Sciences. 2003. Vol. 100, No. 14. P. 8308–8313. https://doi.org/10.1073/pnas.1532535100 #
夜行性のボトルネックと哺乳類におけるオプシンの減少 #
- Gerkema M.P., Davies W.I.L., Foster R.G., Menaker M., Hut R.A. The nocturnal bottleneck and the evolution of activity patterns in mammals // Proceedings of the Royal Society B. 2013. Vol. 280, No. 1765. 20130508. https://doi.org/10.1098/rspb.2013.0508 #
- Borges R., Johnson W.E., O'Brien S.J. et al. Adaptive genomic evolution of opsins reveals that early mammals flourished in nocturnal environments // BMC Genomics. 2018. Vol. 19. P. 121. https://doi.org/10.1186/s12864-017-4417-8 #
- Davies W.I.L., Collin S.P., Hunt D.M. Molecular ecology and adaptation of visual photopigments in craniates // Molecular Ecology. 2012. Vol. 21, No. 13. P. 3121–3158. https://doi.org/10.1111/j.1365-294X.2012.05617.x #
霊長類における三色型色覚の進化 #
- Dulai K.S., von Dornum M., Mollon J.D., Hunt D.M. The evolution of trichromatic color vision by opsin gene duplication in New World and Old World primates // Genome Research. 1999. Vol. 9, No. 7. P. 629–638. https://doi.org/10.1101/gr.9.7.629 #
- Carvalho L.S., Pessoa D.M.A., Mountford J.K., Davies W.I.L., Hunt D.M. The genetic and evolutionary drives behind primate color vision // Frontiers in Ecology and Evolution. 2017. Vol. 5. P. 34. https://doi.org/10.3389/fevo.2017.00034 #
薄明視 #
- Zele A.J., Cao D. Vision under mesopic and scotopic illumination // Frontiers in Psychology. 2015. Vol. 5. P. 1594. https://doi.org/10.3389/fpsyg.2014.01594 #
UVフィルターとしての水晶体と紫外線視 #
- Griswold M.S., Stark W.S. Scotopic spectral sensitivity of phakic and aphakic observers extending into the near ultraviolet // Vision Research. 1992. Vol. 32, No. 9. P. 1739–1743. https://doi.org/10.1016/0042-6989(92)90166-G #
- Hunt D.M., Carvalho L.S., Cowing J.A. et al. Spectral tuning of shortwave-sensitive visual pigments in vertebrates // Photochemistry and Photobiology. 2007. Vol. 83, No. 2. P. 303–310. https://doi.org/10.1562/2006-06-27-IR-952 #
- Tan Z., Sun W., Chen T.-W., Kim D., Ji N. Neuronal representation of ultraviolet visual stimuli in mouse primary visual cortex // Scientific Reports. 2015. Vol. 5. 12597. https://doi.org/10.1038/srep12597 #
水晶体の透過率の加齢変化 #
- Weale R.A. Age and the transmittance of the human crystalline lens // The Journal of Physiology. 1988. Vol. 395. P. 577–587. https://doi.org/10.1113/jphysiol.1988.sp016935 #
- Kessel L., Lundeman J.H., Herbst K., Andersen T.V., Larsen M. Age-related changes in the transmission properties of the human lens and their relevance to circadian entrainment // Journal of Cataract & Refractive Surgery. 2010. Vol. 36, No. 2. P. 308–312. https://doi.org/10.1016/j.jcrs.2009.08.035 #
- Artigas J.M., Felipe A., Navea A., Fandiño A., Artigas C. Spectral transmission of the human crystalline lens in adult and elderly persons // Investigative Ophthalmology & Visual Science. 2012. Vol. 53, No. 7. P. 4076–4084. https://doi.org/10.1167/iovs.12-9471 #
老人性縮瞳と網膜照度 #
- Winn B., Whitaker D., Elliott D.B., Phillips N.J. Factors affecting light-adapted pupil size in normal human subjects // Investigative Ophthalmology & Visual Science. 1994. Vol. 35, No. 3. P. 1132–1137. PMID: 8125724. #
人間の錐体の分光感度 #
- Smith V.C., Pokorny J. Spectral sensitivity of the foveal cone photopigments between 400 and 500 nm // Vision Research. 1975. Vol. 15, No. 2. P. 161–171. https://doi.org/10.1016/0042-6989(75)90203-5 #
- Stiles W.S., Burch J.M. N.P.L. colour-matching investigation: final report (1958) // Optica Acta. 1959. Vol. 6, No. 1. P. 1–26. https://doi.org/10.1080/713826267 #
- Stockman A., MacLeod D.I.A., Johnson N.E. Spectral sensitivities of the human cones // Journal of the Optical Society of America A. 1993. Vol. 10, No. 12. P. 2491–2521. https://doi.org/10.1364/JOSAA.10.002491 #
- Stockman A., Sharpe L.T. The spectral sensitivities of the middle- and long-wavelength-sensitive cones derived from measurements in observers of known genotype // Vision Research. 2000. Vol. 40, No. 13. P. 1711–1737. https://doi.org/10.1016/S0042-6989(00)00021-3 #
分光感度と視物質 #
- Bowmaker J.K., Knowles A. The visual pigments and oil droplets of the chicken retina // Vision Research. 1977. Vol. 17, No. 7. P. 755–764. https://doi.org/10.1016/0042-6989(77)90117-1 #
- Govardovskii V.I., Zueva L.V. Visual pigments of chicken and pigeon // Vision Research. 1977. Vol. 17, No. 4. P. 537–543. https://doi.org/10.1016/0042-6989(77)90052-9 #
- Bowmaker J.K., Heath L.A., Wilkie S.E., Hunt D.M. Visual pigments and oil droplets from six classes of photoreceptor in the retinas of birds // Vision Research. 1997. Vol. 37, No. 16. P. 2183–2194. https://doi.org/10.1016/S0042-6989(97)00026-6 #
- Prescott N.B., Wathes C.M. Spectral sensitivity of the domestic fowl (Gallus g. domesticus) // British Poultry Science. 1999. Vol. 40, No. 3. P. 332–339. https://doi.org/10.1080/00071669987412 #
四色型色覚と色覚 #
- Osorio D., Vorobyev M., Jones C.D. Colour vision of domestic chicks // Journal of Experimental Biology. 1999. Vol. 202, No. 21. P. 2951–2959. https://doi.org/10.1242/jeb.202.21.2951 #
- Olsson P., Lind O., Kelber A. Bird colour vision: behavioural thresholds reveal receptor noise // Journal of Experimental Biology. 2015. Vol. 218, No. 2. P. 184–193. https://doi.org/10.1242/jeb.111187 #
総説とモデル化 #
- Hart N.S. The visual ecology of avian photoreceptors // Progress in Retinal and Eye Research. 2001. Vol. 20, No. 5. P. 675–703. https://doi.org/10.1016/S1350-9462(01)00009-X #
- Wilby D., Toomey M.B., Olsson P., Frederiksen R., Cornwall M.C., Oulton R., Kelber A., Corbo J.C., Roberts N.W. Optics of cone photoreceptors in the chicken (Gallus gallus domesticus) // Journal of the Royal Society Interface. 2015. Vol. 12, No. 111. 20150591. https://doi.org/10.1098/rsif.2015.0591 #
錐体信号を統合するしくみの総説 #
- Solomon S.G., Lennie P. The machinery of colour vision // Nature Reviews Neuroscience. 2007. Vol. 8, No. 4. P. 276–286. https://doi.org/10.1038/nrn2094 #
皮質における反対色信号の変換と統合 #
- Li P., Garg A.K., Zhang L.A. et al. Cone opponent functional domains in primary visual cortex combine signals for color appearance mechanisms // Nature Communications. 2022. Vol. 13. 6344. https://doi.org/10.1038/s41467-022-34020-2 #
- De Valois R.L., Cottaris N.P., Elfar S.D., Mahon L.E., Wilson J.A. Some transformations of color information from lateral geniculate nucleus to striate cortex // Proceedings of the National Academy of Sciences. 2000. Vol. 97, No. 9. P. 4997–5002. https://doi.org/10.1073/pnas.97.9.4997 #
錐体信号の規格化と相対的結合のモデル #
- Rezeanu D., Neitz M., Neitz J. From cones to color vision: a neurobiological model that explains the unique hues // Journal of the Optical Society of America A. 2023. Vol. 40, No. 3. P. A1–A8. https://doi.org/10.1364/JOSAA.477227 #
- Neitz J., Neitz M. Neurobiological hypothesis of color appearance and hue perception // Journal of the Optical Society of America A. 2014. Vol. 31, No. 4. P. A195–A207. https://doi.org/10.1364/JOSAA.31.00A195 #
- Vorobyev M., Osorio D. Receptor noise as a determinant of colour thresholds // Proceedings of the Royal Society of London. Series B: Biological Sciences. 1998. Vol. 265, No. 1394. P. 351–358. https://doi.org/10.1098/rspb.1998.0302 #
著者:ymik · 2026年11月19日